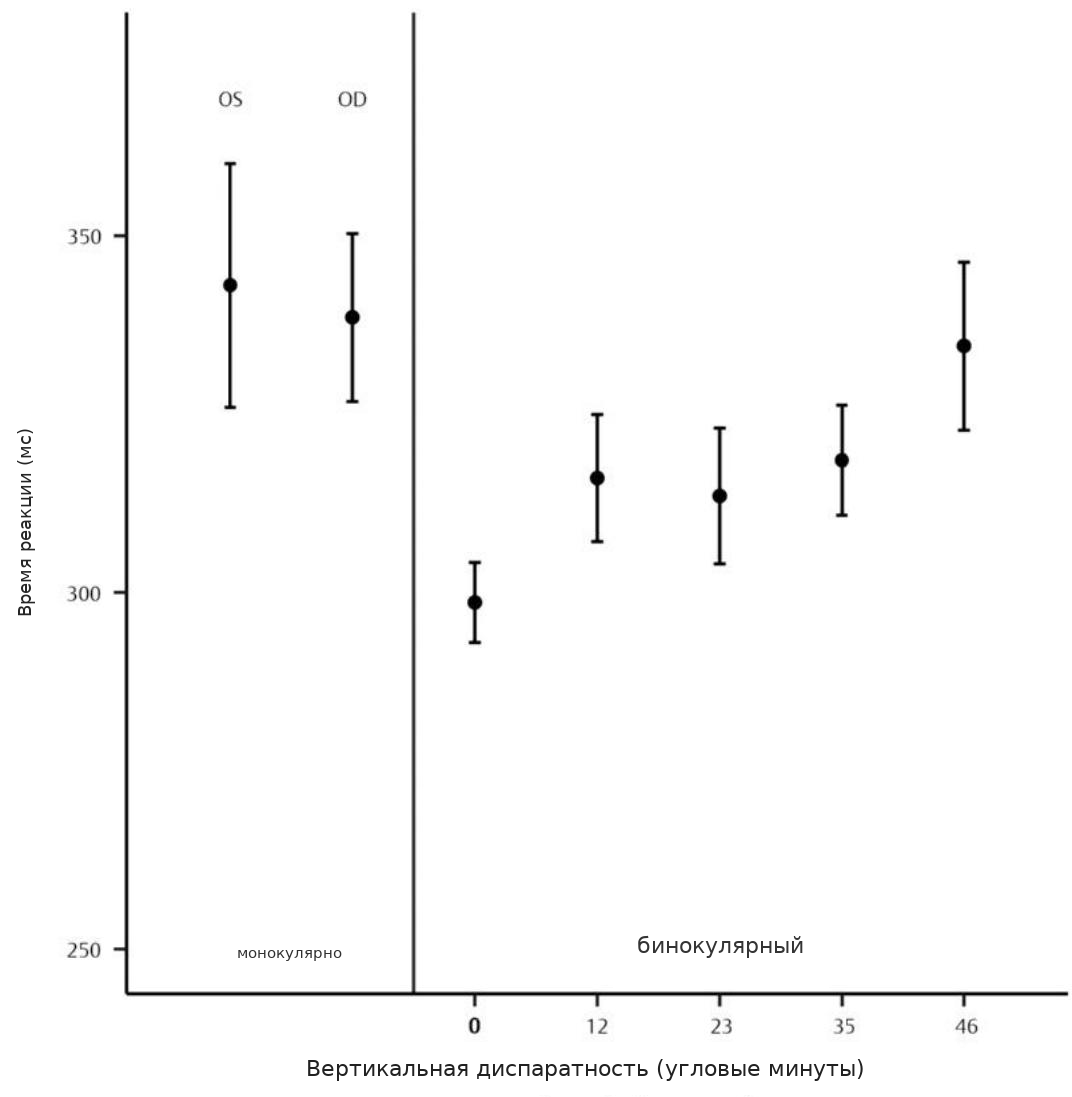
Рис. 1.77 Монокулярное и бинокулярное время реакции нормального испытуемого на слабо надпороговый световой раздражитель в 5° левее точки фиксации (представлены средние значения и стандартная ошибка). Бинокулярный раздражитель предъявлялся с вертикальной диспаратностью от 0 до 46 угловых минут и при диспаратности более 23 угловых минут воспринимался двоенно. Значимое сокращение времени реакции при бинокулярном предъявлении без диспаратности и почти монокулярные значения времени реакции далеко за пределами зон Панума доказывают в данном эксперименте физиологическую бинокулярную суммацию. Время реакции для двоенно воспринимаемого светового раздражителя с диспаратностью 35 угловых минут, которое все еще однозначно короче по сравнению с монокулярным временем реакции, показывает, что бинокулярная связь может сохраняться и за пределами зон Панума (источник данных: [77]).
1.4.7 Интеркулярный перенос последействий (интеркулярный трансфер)
После прекращения внешнего зрительного раздражителя в зрительной системе сохраняются временные последействия, которые можно измерить психофизически. К ним относятся периодические послеобразы после коротких вспышек света [59], а также негативные послеобразы, возникающие после длительного облучения определенной области сетчатки. Оба последействия локализованы в сетчатке и представляют собой классическую парадигму стабилизированных ретинальных образов для определения зрительной локализации в монокулярных и бинокулярных условиях ([16], [68], [69], [70]; см. послеобраз). Ряд других последействий отражает процессы, локализация которых, вероятно, преимущественно находится в зрительной коре. Они пригодны для изучения бинокулярной сенсорики, так как последействие после монокулярной адаптации одного глаза часто наблюдается и в нестимулированном глазе-партнере. Последействие как бы переносится с одного глаза на другой.
Последействия для надпороговых раздражителей
Наиболее известным последействием этого типа является описанный еще в древности послеобраз движения (исторический обзор в [11]). Если в течение длительного времени рассматривать равномерно движущиеся контуры (предобраз, адаптационный раздражитель), а затем перевести взгляд на стационарный контур (тестовый образ), то последний кажется движущимся в направлении, противоположном предобразу. Несмотря на ощущение движения, такой негативный послеобраз движения «не сдвигается с места» [140]. Послеобразы движения могут быть вызваны прямолинейно движущимися ([1], [153]; Waterfall Illusion) или вращающимися предобразами. К последним относятся спиральные послеобразы Plateau [145], для которых Dvorak [42] первым описал интеркулярный трансфер. Доля переноса составляет около 70 %, если наблюдатель обладает нормальной бинокулярной сенсорикой [122]. С помощью послеобразов движения, а также других последействий удалось показать, что, помимо этой интеркулярной обработки изображений, существуют также чисто бинокулярные процессы. Монокулярная адаптация к вращению паттерна по часовой стрелке в сочетании с бинокулярной адаптацией к вращению паттерна в противоположном направлении приводит к монокулярному последействию движения против часовой стрелки, в то время как при бинокулярном рассмотрении тестовый образ кажется вращающимся по часовой стрелке [4], [168], [193].
Еще одним последействием, интеркулярный трансфер которого часто исследовался, является эффект наклона (Tilt-after-Effect) [28], [55], [193]. После длительного рассматривания полосатого паттерна с косыми контурами впоследствии рассматриваемые вертикальные или горизонтальные полосы воспринимаются наклоненными в противоположную сторону (▶рис. 1.78). Так, например, после длительного рассматривания пред образа с ориентацией полос 75° впоследствии предъявляемый тестовый образ с вертикальными полосами воспринимается наклоненным примерно на 3° против часовой стрелки.
A
B
C
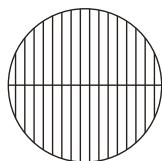
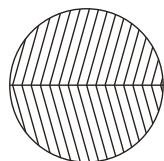
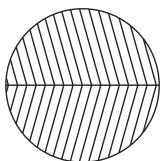
Рис. 1.78 Схематическое изображение эффекта наклона (Tilt-after-Effect). После адаптации к пред образу A объективно вертикальные линии тестового образа B кажутся наклоненными в сторону, противоположную линиям в A, как показано в C (преувеличено) (паттерн по [193]).
Повышение порога вследствие адаптации
После восприятия надпорогового паттерна порог восприятия аналогичного паттерна повышается. С помощью таких экспериментов по адаптации можно изолированно «утомить» отдельные системы анализа изображений в зрительной системе и таким образом идентифицировать их психофизически. Этот принцип был признан Гельмгольцем [67] уже для сетчатки: «Утомление сетчатки, следовательно, распространяет свое действие не равномерно на каждый вид раздражения, а главным образом на такое раздражение, которое сходно с первичным». Подобная парадигма адаптации, которая переносится при нормальном бинокулярном зрении, представляет собой снижение контрастной чувствительности к полосатым паттернам после предшествующей стимуляции высококонтрастным полосатым паттерном с такими же межполосными интервалами и ориентацией [21], [174]. Послеэффект снижает контрастную чувствительность на ипсилатеральном глазу примерно на 50 %, при этом около 65 % этого эффекта переносится на парный глаз [167]. Ценность таких исследований для функциональной проверки бинокулярного зрения является спорной, так как перенос может сохраняться и у лиц со страбизмом [3], [124]. С помощью функциональной магнитно-резонансной томографии (фМРТ) также может быть подтверждена интер-окулярная адаптация в первичной зрительной коре (V1). Однако у амблиопов, независимо от адаптированного глаза, интер-окулярная адаптация в V1 обнаружена не была [96].