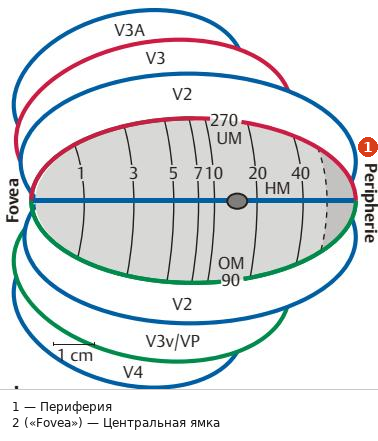
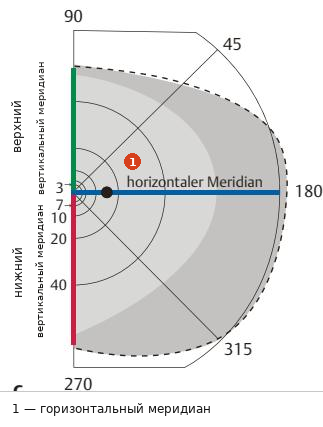
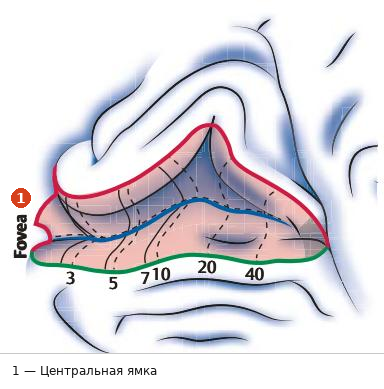
Рис. 1.79 Схематическое изображение внутренней стороны левой затылочной доли. С частично раскрытой fissura calcarina (a), ретинотопическим распределением на распластанных областях V1, V2, V3, V3v, V3A и V4 (b) и соответствующем поле зрения.
a Границы области V1 с областью V2 сверху и снизу обозначены пунктиром; цифры на нижней линии обозначают эксцентриситет соответствующих ретинальных рецептивных полей.
b Здесь представлена проекция правой половины поля зрения обоих глаз на распластанную зрительную кору. Черное пятно на горизонтальном меридиане поля зрения (HM) от V1 соответствует слепому пятну правого глаза. Внутри V1 репрезентация правого нижнего квадранта поля зрения расположена над HM, а правого верхнего квадранта — под HM. Таким образом, граница между V1 и V2 соответствует вертикальному меридиану поля зрения. В V3 половина поля зрения снова разделена на верхний и нижний квадранты, при этом границы поочередно соответствуют горизонтальному и вертикальному меридианам.
c Границы линий эксцентриситета и меридианов в поле зрения, представленных на рис. b. Серая область воспринимается только одним глазом.
Запомните

Нейронная связь отдельных областей, по всей видимости, организована так, что сообщения парвоцеллюлярной и магноцеллюлярной систем, поступающие в различных слоях area striata, после обработки в более высоком слое от V1 (ориентация контура) передаются непосредственно или через V2 [14] в последующие области:
в V3 для анализа движущихся форм [6]
в V4 для обработки цветных контуров
в V5 для анализа движения [33], [107], [164]
Однако отдельные функции не привязаны исключительно к указанным полям. Эти антероградные проекции осуществляются ретинотопически с малыми рецептивными полями в V1, что делает ее нейронным субстратом локальных признаков и разрешающей способности, и по все более грубой сетке в последующих областях, что позволяет им выполнять свои специальные задачи «глобально» с более высокого уровня. Обширная система обратных проекций, более не имеющая ретинотопического порядка, может, по мнению Zeki, обеспечивать интеграцию информации в топографически точно организованной области V1. Более современные работы с пациентами показывают, что, вероятно, существуют и прямые проекции в высшие зрительные области (например, для обработки движения) в обход V1 [73].
Парциальное перекрещивание зрительного нерва в хиазме и последующее разделение на правую половину зрительной коры для левой половины поля зрения и левую половину зрительной коры для правого поля зрения делает необходимым еще одну нейронную систему, которая связывала бы сенсорные впечатления от двух половин поля зрения. Эта межполушарная кортико-кортикальная связь осуществляется через corpus callosum. В своей задней части оно может передавать зрительные сигналы, а в передних частях — другие соматосенсорные функции, такие как осязание, с помощью быстропроводящих миелинизированных волокон между полушариями. Точная топография и малые RF позволяют осуществлять такое сопряжение в V1, естественно, только в узкой полосе вдоль вертикальных разделительных линий половин поля зрения. В V1 это соответствует клеткам, расположенным на границе с V2. Там удалось обнаружить клетки, RF которых разделены вертикальным меридианом поля зрения на 2 половины, при этом контрлатеральная половина поля зрения снабжалась напрямую через односторонний зрительный путь, а ипсилатеральная половина поля зрения — через посредничество corpus callosum. В последующих областях V1, где ретинотопическая точность снижается в пользу генерализованного анализа изображений, перекрытие постепенно увеличивается и в V5 может достигать 20°. Таким образом, понятно, почему Mehdorn [120], а также Dengler и Kommerell [39] при предъявлении стереоизображений, симметрично распределенных относительно вертикального меридиана поля зрения, смогли обнаружить у человека восприятие глубины при диспаратности более 20° (!).
Функциональное строение зрительной коры
Area striata в развернутом состоянии представляет собой пласт толщиной около 2 мм. Благодаря своему анатомически заметному параллельному поверхности расслоению на 6 клеточных слоев она является наиболее детально изученной частью зрительной коры. Рецептивные поля ее нейронов — за исключением входных нейронов в слое IV и клеток, отвечающих за кодирование цвета, — больше не имеют круговой организации «центр-периферия», а вместо этого имеют различную прямоугольную форму с разными критериями торможения и возбуждения.
Простые клетки (Simple Cells) реагируют на неподвижные и движущиеся контуры на сетчатке. Комплексные клетки (Complex Cells) возбуждаются почти исключительно движущимися контурами или интермиттирующим воздействием стимула; прежде всего, в отличие от простых клеток, степень возбуждения внутри рецептивного поля не зависит от места приложения стимула. Большинство этих двух типов клеток обладают ориентационной специфичностью, то есть они возбудимы только в том случае, если стимул в виде контура падает на сетчатку под определенным углом. Часть клеток при этом реагирует только на определенное направление движения (специфичность к движению). Среди обоих типов клеток встречаются нейроны, которые оптимально реагируют только при определенной длине контура (так называемое конечное торможение, поскольку длина стимула, превышающая оптимальную, приводит к торможению клетки). Наконец, существуют цветоспецифические клетки с круглыми RF, которые, в отличие от «цветослепых» простых и комплексных клеток, организованы симметрично и, следовательно, не обладают ориентационной специфичностью.
Кроме того, степень возбудимости корковых нейронов, по-видимому, дополнительно модулируется V2 направлением взгляда, что может быть интерпретировано как специфическое для направления взгляда кодирование эгоцентрической локализации направления [190].
Электрофизиологические исследования, проведенные преимущественно в Area striata, показали, что нейронное сопряжение происходит в первую очередь перпендикулярно поверхности. По аналогии с первичной соматосенсорной корой, для которой Mountcastle (1957) обнаружил аналогичную вертикальную организацию у кошки, Hubel и Wiesel [89] заимствовали термин «колонна» (столбец). Клетки, расположенные в линию перпендикулярно поверхности, демонстрируют одинаковые оптимальные условия стимуляции, такие как окулярность, цвет и ориентация. Их рецептивные поля относятся к одной и той же области сетчатки. При срезе перпендикулярно поверхности первичной зрительной коры эта функциональная архитектура после соответствующего окрашивания выглядит как состоящая из колонн, при этом отдельные колонны кодируют различные функции [98], [110], [137].