Оптокинетика оценивается по тому, находится ли скорость медленных фаз нистагма в соответствующем соотношении со скоростью стимула. Частота нистагма не является определяющей, так как два малых удара нистагма эквивалентны одному большому удару нистагма, если только скорость медленных фаз нистагма одинакова.
Важно, одинаково ли легко вызывается оптокинетический нистагм при движении стимула вправо и влево.
Разница между верхним и нижним направлениями обычно не является патологической. Как правило, оптокинетика при движении стимула вниз выражена слабее.
Движение зеркального пространства
Так называемое движение зеркального пространства [46] возникает, если заставить пациента смотреть в зеркало, которое вращают вокруг вертикальной или горизонтальной оси. Подходящими являются, например, настенные зеркала, установленные над раковинами. Пациенту кажется, что пространство, распределенное в глубину, движется. Если он смотрит прямо в пространство без специального намерения зафиксировать взгляд, возникает оптокинетический нистагм. Если же он фиксирует определенные детали, например, собственное отражение, возникают плавные следящие движения глаз.
При традиционных оптокинетических стимулах некоторым людям удается удерживать глаза неподвижными, концентрируясь на воображаемой точке фиксации, расположенной за стимулом. От движения зеркального пространства, напротив, практически невозможно уклониться, так как движутся как ближние, так и дальние объекты. Поэтому движение зеркального пространства может быть использовано для опровержения мнимого нарушения движений глаз или слепоты. Кроме того, движение зеркального пространства применимо у младенцев и маленьких детей для проверки оптокинетической функции.
Физиологические основы
Система слежения и оптокинетика часто взаимодействуют. Однако часто возникает конкуренция между обеими системами. В этом случае распределение внимания определяет, вызовет ли маленький зрительный объект следящее движение глаз или же обширные контуры спровоцируют оптокинетический нистагм. Если, например, человек хочет наблюдать за птицей, летящей на фоне гонимых ветром облаков, побеждает система слежения, и изображение птицы остается в центре сетчатки, в то время как смещение изображений облаков по сетчатке остается без эффекта. Конкуренция между оптокинетикой и системой слежения может возникнуть и перед неподвижными контурами. Это можно проверить на себе, перемещая палец взад-вперед перед стеной с изображениями. Если сконцентрировать внимание на пальце, побеждает фовеальная система слежения, а оптокинетическая стимуляция периферии сетчатки остается безрезультатной.
Как запускаются и поддерживаются следящие движения глаз и оптокинетика? Когда объект начинает двигаться, его изображение смещается по сетчатке. Этот стимул запускает следящее движение глаз или оптокинетику. Чем больше угловая скорость глаз адаптируется к скорости объекта, тем меньше смещается изображение по сетчатке. Тем не менее глаза не перестают следовать за объектом, так как мозг информирован о текущем движении глаз, поскольку он сам отдает соответствующую команду. Отсутствие ретинального смещения изображения воспринимается мозгом как подтверждение того, что движение следует продолжать. Если глаза следуют слишком медленно или слишком быстро, изображение на сетчатке снова смещается. Это побуждает мозг скорректировать скорость движения глаз.
В отличие от оптокинетики, система слежения реагирует не только на смещение, но и на положение изображения на сетчатке. Проекция объекта фиксации в непосредственной близости от фовеолы стимулирует не только саккады, но и систему слежения. Это можно изучить, например, при отслеживании парацентрального вспышечного послеобраза. Послеобраз кажется плавающим и влечет за собой взгляд не рывками, а плавно [33], [44]. В повседневной жизни этот механизм служит для того, чтобы привести изображение движущегося объекта, опережающего взгляд, на фовеолу.
Еще одно различие между оптокинетической системой и системой слежения заключается в том, что система слежения мгновенно реагирует на внезапный двигательный стимул, в то время как оптокинетическая система реагирует медленно и нуждается в 10 секундах для адаптации к двигательному стимулу. Эта адаптация происходит в вестибулярных ядрах, которые функционируют как накопитель. Зарядка этого накопителя проявляется в виде оптокинетического посленистагма. Чтобы его зарегистрировать, после двигательной стимуляции необходимо затемнить помещение.
Поскольку оптокинетические стимулы обычно запускают и быстро реагирующую систему слежения, постепенный запуск оптокинетики обнаруживается только после поражений, которые изолированно отключили систему слежения. Это встречается редко, так как многие структуры мозга используются совместно оптокинетической системой и системой слежения.
Анатомические структуры
Структуры системы плавного следования глаз и оптокинетики в филогенетическом отношении развились гораздо сильнее, чем вестибулярная система, которая у низших животных уже достаточно совершенна. У человека оптокинетика связана с функциональностью коры головного мозга, тогда как у животных — нет. Даже у обезьяны, чья окуломоторная система в остальном в значительной степени соответствует человеческой, оптокинетика не исчезает полностью после удаления коры головного мозга.
В крупных ганглионарных клетках сетчатки начинается магноцеллюлярный путь, отвечающий за восприятие движения. Напротив, в мелких ганглионарных клетках сетчатки начинается парвоцеллюлярный путь, который в основном отвечает за распознавание формы и цвета. Магноцеллюлярный путь передает информацию о движении в латеральное коленчатое тело (corpus geniculatum laterale) и далее в первичную зрительную кору. Оттуда информация о движении передается в другие области коры, в частности, в идентифицированные у обезьян области MT (средняя височная область) и MST (медиальная верхняя височная область), а также в фронтальное поле глаз. Совместно с первичной зрительной корой MT, MST и фронтальное поле глаз осуществляют переход от сенсорной к моторной системе, то есть запускают плавные следящие движения и оптокинетику. Области человека, соответствующие MT и MST обезьяны, расположены на границе височной, теменной и затылочной долей (▶Рис. 1.39).
Для запуска следящих движений и медленных фаз оптокинетического нистагма в обе стороны достаточно первичной зрительной коры одной стороны. Поэтому следящие движения и оптокинетика сохраняются при выпадении одной половины зрительной коры с соответствующей гомонимной гемианопсией. Однако ниже зрительной коры пути распределяются таким образом, что волокна, отвечающие за следящие движения вправо и медленные фазы нистагма, проходят в правом, а волокна для движений влево — в левом теменно-затылочном белом веществе (▶Рис. 1.42a, b). Таким образом, поражение теменно-затылочного белого вещества может привести к одностороннему выпадению следящих движений и оптокинетики, в отличие от поражения, ограниченного зрительной корой [32]. Чтобы половина зрительной коры могла также запускать следящие движения и медленные фазы нистагма в противоположную сторону, она должна дополнительно проецироваться через мозольтое тело в противоположное теменно-затылочное белое вещество (▶Рис. 1.42a, b).
От коры головного мозга (MT-MST) информация о движении поступает в дорсолатеральное pontine ядро (DLPN) [18]. Из DLPN информация о движении перекрестно поступает в мозжечок, в частности в задний червь мозжечка и в flocculus. Наконец, информация о движении передается в вестибулярные ядра (VN). Вестибулярные ядра затем функционируют как общий командный центр для всех медленных движений глаз, то есть как для визуальных, так и для вестибулярных. Вестибулярные ядра проецируются в ядра глазодвигательных мышц, частично напрямую, частично через nucleus praepositus hypoglossi, который действует как интегратор. Путь от MT и MST через дорсолатеральное pontine ядро (DLPN) и мозжечок является наиболее важным для плавного следования [34].
Кроме того, значительную роль играет добавочная оптическая система (AOS), преимущественно при обширных оптокинетических стимулах. Переключающими станциями AOS являются ядро зрительного тракта (NOT) и прилегающее к нему дорсальное терминальное ядро добавочного зрительного тракта (DTN). NOT и DTN расположены в среднем мозге между верхним холмиком (colliculus superior) и пульвинаром. Правый NOT-DTN отвечает за следящие движения вправо, а левый NOT-DTN — за следящие движения влево и медленные фазы OKN (▶Рис. 1.42a, b).
У животных с латерально расположенными глазами, например у кролика, NOT-DTN получает сигнал о движении только от противоположной сетчатки, а не через кору головного мозга (пунктирные стрелки на ▼Рис. 1.42a, b). Если стимулируется только один глаз, оптокинетика кролика асимметрична: только движение, направленное назально, приводит к нистагму.
У человека субкортикальный путь к NOT-DTN играет роль только в первые 2–3 месяца жизни. Соответственно, при монокулярной стимуляции выраженная назотемпоральная асимметрия оптокинетики наблюдается только в младенческом возрасте. Движение, направленное темпорально, оказывает более слабое воздействие, чем движение, направленное назально [25]. По мере дальнейшего созревания и формирования бинокулярного зрения передача оптокинетики переходит к зрительной коре плюс MT и MST [17], [28]. После этого монокулярная стимуляция, направленная темпорально, действует почти так же сильно, как и направленная назально [36], [42], [59]. Только при косоглазии в раннем детстве назотемпоральная асимметрия может сохраняться пожизненно.
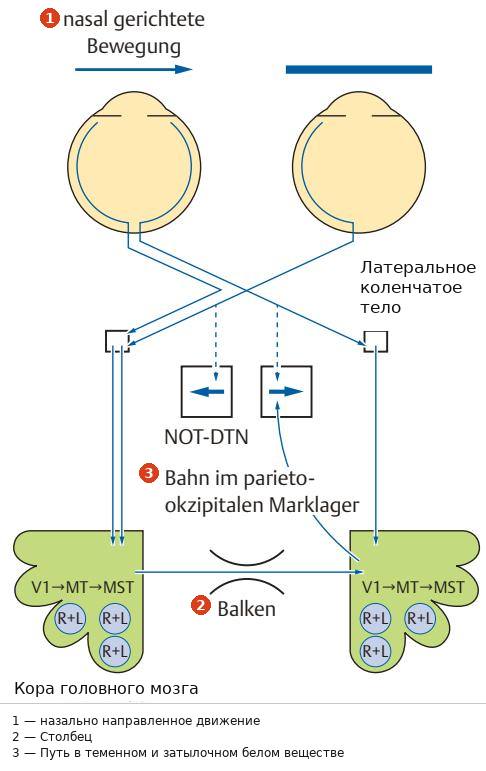
a Область V1 с бинокулярными клетками