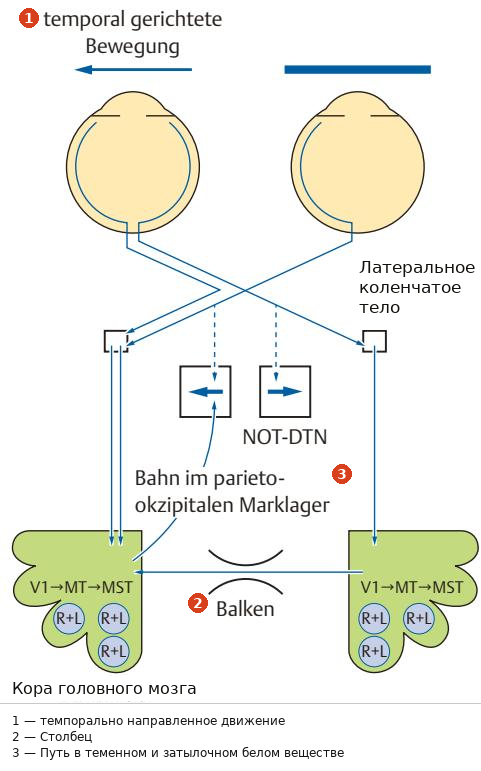
b Область V1 с бинокулярными клетками
Рис. 1.42 Пути горизонтальных плавных следящих движений глаз и оптокинетики. NOT-DTN — это ядра, расположенные латерально перед четверохолмием в среднем мозге. Правый NOT-DTN может запускать только следящие движения вправо, левый — только влево.
Команды поступают в оба NOT-DTN двумя путями: субкортикальным и кортикальным. У животных со слабым бинокулярным зрением (кролик) субкортикальный путь от противоположного глаза является единственным (пунктирные стрелки). Например, левый глаз управляет только правым NOT-DTN. Поэтому у кролика при стимуляции левого глаза можно вызвать только следящие движения вправо (назально). Субкортикальный путь, «унаследованный» от кролика, также обнаруживается у человека в виде добавочного зрительного тракта [21], но, вероятно, играет роль только в первые 3 месяца жизни. В дальнейшем созревают связи через кору головного мозга, которые позволяют управлять обоими NOT-DTN от одного глаза [37], [28].
a На этом рисунке показана связь через правую и левую кору головного мозга с противоположным NOT-DTN, которая опосредует следящее движение, направленное назально. (V1 — первичная зрительная область, оттуда осуществляется управление областями MT и MST, отвечающими за движение.)
b На этом рисунке показана связь с односторонним NOT-DTN, которая опосредует следящее движение, направленное темпорально. Обычно следящее движение, направленное темпорально, работает так же хорошо, как и направленное назально. При косоглазии в раннем детстве следящее движение, направленное темпорально, нарушено (▶Рис. 4.55). У приматов MT-MST проецируется не только в ипсилатеральный NOT-DTN, но и в ипсилатеральное дорсолатеральное pontine ядро (DLPN) [16], [18], [29]. Эта проекция более важна для следящих движений, вызванных фовеально, чем проекция в NOT-DTN.
Вестибулоокулярная компенсаторная реакция
Вестибулоокулярный рефлекс (VOR), управляемый полукружными каналами внутреннего уха, стабилизирует наши глаза в пространстве при поворотах головы из стороны в сторону. Таким образом VOR совместно с оптокинетикой предотвращает размытие изображения на сетчатке. Вестибулярная система специализируется на компенсации кратковременных сильных угловых ускорений головы, а оптокинетическая система — на компенсации длительных медленных движений головы. Поэтому вестибулярная и оптокинетическая системы идеально дополняют друг друга. Так, например, VOR предотвращает дрожание изображения на сетчатке при кивках головой. Одной оптокинетики для этого было бы недостаточно из-за ее инертности. Влияние проприоцептивных сигналов от шеи при повороте головы обычно незначительно [1]. Только при выпадении обоих органов равновесия проприоцепция от шеи приобретает значение.
С помощью простого опыта можно убедиться в том, что VOR очень эффективно компенсирует высокие угловые ускорения головы. Текст остается читаемым, если быстро поворачивать голову из стороны в сторону. Напротив, система слежения за объектом отказывает, если при неподвижной голове перемещать текст из стороны в сторону с той же угловой скоростью. В этом случае текст кажется полностью размытым.
Рецепторным органом для VOR являются полукружные каналы, расположенные в трех плоскостях пространства (▶Рис. 1.43). При изменении скорости жидкость в полукружных каналах отстает относительно черепа. Это приводит к возникновению сдвигового потока, который отклоняет сенсорные волоски (стереоцилии) волосковых клеток, выступающие в мембрану купулы. В зависимости от направления отклонения нервные волокна, идущие к стволу мозга, возбуждаются или тормозятся. При неподвижной голове активность всех 6 полукружных каналов сбалансирована. При начале поворота головы вправо активируется правый горизонтальный полукружный канал, а левый тормозится. Эти реципрокные изменения активности вызывают компенсаторное движение глаз влево. В двух других плоскостях пространства VOR запускается за счет реципрокных изменений активности вертикальных полукружных каналов.
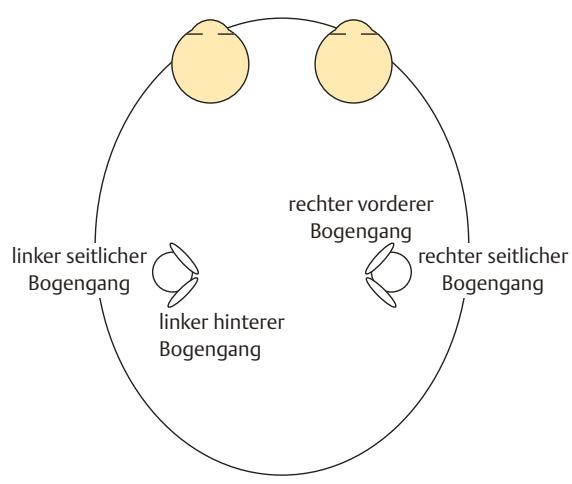
Рис. 1.43 Полукружные каналы в правом и левом височных костях. Полукружные каналы обеих сторон работают совместно. Возбуждается тот полукружный канал, в сторону которого поворачивается голова. Тормозится тот полукружный канал, от которого голова отворачивается. Так, например, при повороте головы вправо активируется правый латеральный полукружный канал, а левый латеральный тормозится. При повороте головы по диагонали вправо-вперед-вниз активируется правый передний полукружный канал, а левый задний тормозится. При большинстве поворотов головы, встречающихся в повседневной жизни, одновременно активируются как минимум 2 полукружных канала и тормозятся 2. Так, например, при повороте головы строго вперед-вниз (при кивке) активируются передние полукружные каналы обеих сторон, а задние обеих сторон тормозятся. При наклоне головы к правому плечу активируются передний и задний полукружные каналы правой стороны, а передний и задний полукружные каналы левой стороны тормозятся.
Запомните

При вестибулоокулярном рефлексе (VOR) во время медленных фаз нистагма глаза «плывут» в том же направлении, что и эндолимфа в полукружных каналах.
Время реакции VOR очень короткое. Это связано с тем, что для передачи раздражения от полукружных каналов к глазным мышцам требуется всего 3 последовательно соединенных нейрона. Тела нейронов 1-го порядка расположены при полукружных каналах в ганглии вестибулярного нерва (ganglion vestibuli). Эти клетки воспринимают сигнал от мембраны купулы, преобразуют его в потенциалы действия и передают в вестибулярное ядро (nucleus vestibularis) в мосту. Там находятся тела нейронов 2-го порядка, которые передают сигнал к ядрам глазодвигательных нервов (III, IV и VI). Тела нейронов 3-го порядка, расположенные в ядрах глазодвигательных нервов, проводят возбуждение по соответствующим черепным нервам к мышцам глаза.
Исключением из этого трехнейронного рефлекса является только m. rectus medialis. Для него включен интернуклеарный нейрон, таким образом, рефлекторный путь состоит из 4 нейронов. Интернуклеарные нейроны берут начало в ядре отводящего нерва и после перекреста в медиальном продольном пучке идут к ядру глазодвигательного нерва (nucleus oculomotorius) (▶Рис. 1.44).