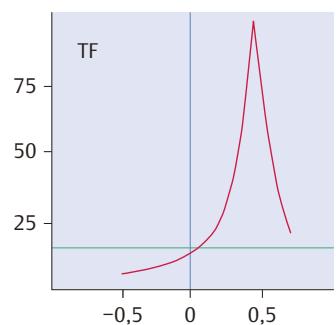
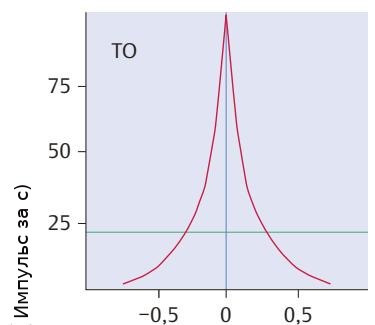
Рис. 1.80 Схематическое изображение профилей возбуждения стереонейронов в V1, V2 и V3 в зависимости от диспаратности стимула (см. текст). Горизонтальные зеленые линии показывают уровень возбуждения при монокулярной стимуляции. Если кривая находится ниже, клетка при данной диспаратности тормозится (нейроны TN и нейроны NE имеют зеркальные профили по отношению к представленным нейронам TF и FA). Изображение основано на данных, полученных на бодрствующей обезьяне [148].

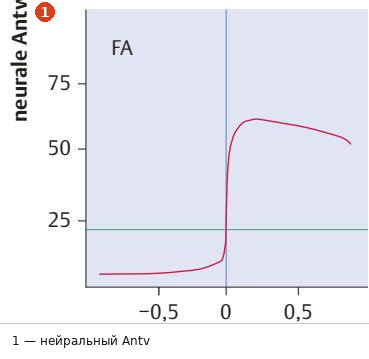
горизонтальная диспаратность (°)
Около 20 % нейронов, чувствительных к линейным и полосовым стереограммам, а также часть плоских нейронов реагируют на те же диспаратности в стереограмме с рандомными точками (Random-Dot-Stereogramm). Эти клетки обладают почти исключительно комплексными свойствами РП.
Для особых форм стереопсиса, которые селективно адаптируются в психофизическом эксперименте, а именно для ориентационной диспаратности [188] и глубинной кинетики [147], в V1 и V2 были обнаружены нейроны, которые селективно реагируют на один из двух стереостимулов.
Запомните
Количество возбуждающих и тормозных нейронов для узкой области диспаратности максимально в области гороптера (для кошки: Nikara et al. [128]; для обезьяны: Poggio и Fischer [146]). Перед и за гороптером стереочувствительные нейроны обнаруживаются все реже.
Таким образом, частота оптимальных диспаратности стимулов статистически распределена вокруг нулевой диспаратности (▶Рис. 1.81). Ширина такой кривой распределения представляет собой коррелят области Панума. Если определенная степень диспаратности изображения превышается, в зрительной коре становится недостаточно стереонейронов для обеспечения сенсорного слияния. Стимул воспринимается двоенно, даже если небольшое число нейронов все еще реагирует на заданную диспаратность и должно передавать смугое представление о положении «перед» или «за» (стереоскопическое восприятие двойных изображений). С электрофизиологической точки зрения гороптер может быть определен как точка стимула во внешнем пространстве, которая возбуждает максимальное количество бинокулярных корковых нейронов [18]. Это соответствует определению монокулярной фиксации, также сформулированному Bishop. При этом глаз направлен на точку объекта, которая возбуждает максимум рецептивных полей (и, следовательно, корковых нейронов). Поэтому представляется обоснованным предположение, что максимизация числа возбужденных зрительных нейронов является основным принципом монокулярного и бинокулярного управления положением глаз [54]. Направление и величина необходимых конвергентных движений в таком случае определялись бы специфическим профилем возбуждения различных детекторов диспаратности. Действительно, удается добиться разрыва слияния простых структурированных объектов путем наложения диспаратных паттернов из случайных точек (Random-Dot-patterns), которые являются высокосложными, так что изначально слитый объект воспринимается двоенно, а паттерн из случайных точек, активирующий множество нейронов, воспринимается бинокулярно одинаково [54].
Многочисленные отдельные данные о функции различных клеток зрительной коры у бодрствующей обезьяны показывают, что зрительная система приматов обладает инструментарием для анализа всех деталей ретинального изображения. При этом анализ осуществляется в функционально различных ретинотопически расположенных группах нейронов, специализирующихся на обработке отдельных свойств изображения. В среднем увеличивающийся размер RF в ряду зрительных областей от V1 до V5 и связь «специалистов» в различных областях через «каналы», такие как магнито- и парвоцеллюлярная системы, позволяют сделать вывод, что в V1, помимо приема сигналов, представлена разрешающая способность, а в экстрастриарных областях — обработка взаимосвязанных функций [195], [196].
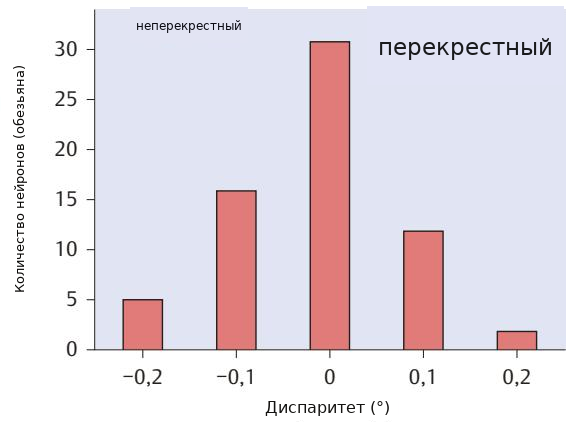
Рис. 1.81 Частота оптимальных диспаратности стимулов T0-нейронов в центральном поле зрения у обезьяны (n = 80 в V1 и V2). Отдельные столбцы соответствуют нейронам в различных диапазонах диспаратности. Диаграмма показывает, что наиболее часто встречаются те нейроны, которые сильнее всего возбуждаются стимулами с соответствующим отображением, то есть формируют нейронный субстрат гороптера. Количество нейронов, чьи рецептивные поля (RF) демонстрируют перекрестную (справа) или неперекрестную (слева) диспаратность, уменьшается с увеличением величины диспаратности. Область между максимальными диспаратностями психофизически соответствует области Панума. Форма кривой, по-видимому, соответствует распределению Гаусса (колоколообразная кривая статистического нормального распределения) диспаратности RF. Изображение основано на данных Poggio и Fischer [146].
Однако до сих пор неясно, как в конечном итоге из множества анатомических синапсов формируется восприятие изображения нашей окружающей среды. Более новые данные указывают на то, что пространственно разделенные группы нейронов, анализирующие объект в поле зрения, объединяются в ансамбль за счет синхронизации своих разрядов (обзор в [45]). Таким образом, за счет различных во времени паттернов разрядов может происходить отделение отдельных объектов от их фона. Подобное временное кодирование можно обнаружить также у кошки для нейронов правого и левого глаза, которые анализируют одно и то же изображение при наличии нормального бинокулярного зрения. Однако при косоглазии у животных синхронизация отсутствует.
В качестве морфологического субстрата синхронизации в зрительной коре можно обнаружить протяженные горизонтальные волокна (Long-ranging horizontal Fibers), которые интегрируют информацию из далеко расположенных точек поля зрения [114]. У нормальных подопытных животных эти волокна в равной степени соединяют доминантные нейроны правого и левого глаза. У животных с косоглазием они соединяют почти исключительно нейроны с одинаковой глазной доминантой [117].