1.2.2 Иннервация глазных мышц
Глазные мышцы управляются ядрами трех черепных нервов. Ядро глазодвигательного нерва (III пара ЧН) иннервирует m. rectus medialis (медиальную прямую мышцу), m. rectus superior (верхнюю прямую мышцу), m. rectus inferior (нижнюю прямую мышцу) и m. obliquus inferior (нижнюю косую мышцу) (а также m. levator palpebrae, а также — своим парасимпатическим компонентом — m. ciliaris и m. sphincter pupillae). Ядро блокового нерва (IV пара ЧН) иннервирует m. obliquus superior (верхнюю косую мышцу), ядро отводящего нерва (VI пара ЧН) — m. rectus lateralis (латеральную прямую мышцу).
В каждую глазную мышцу входит около 1000 нервных волокон, которые разветвляются в мышце и иннервируют каждое примерно 4–40 мышечных волокон [41]. Совокупность всех мышечных волокон, управляемых одним нервным волокном, называют двигательной единицей.
Мозг использует 2 различных способа увеличения тяговой силы мышцы:
он усиливает активность двигательных единиц.
он задействует новые двигательные единицы, которые ранее находились в покое.
Это будет пояснено на примере m. rectus lateralis (▶рис. 1.33). В положении «выкл.», т. е. при экстремальной аддукции, почти все двигательные единицы находятся в покое. По мере постепенного подключения дополнительных двигательных единиц глазное яблоко постепенно переходит в положение «вкл.», пока при экстремальном положении абдукции не будут активированы почти все двигательные единицы. При повторении последовательности движений каждая двигательная единица снова и снова задействуется начиная с назначенного ей положения глаза, то есть с ее порога. Низкопороговые двигательные единицы работают уже в назальной половине поля зрения, высокопороговые — только в темпоральной.
В экстремальном положении «вкл.» большинство двигательных единиц достигают частоты около 300 разрядов в секунду. При больших саккадах частота может возрастать до 600 разрядов в секунду.
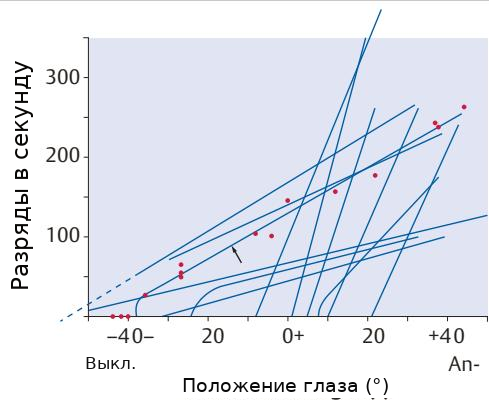
Рис. 1.33 Зависимость частоты разрядов отдельных двигательных единиц от положения глаза. Каждая единица начинает работать в специфическом для нее пороговом положении. Активность возрастает по мере того, как глаз глубже входит в зону действия соответствующей мышцы. 0° означает среднее положение. Для m. rectus lateralis положение «вкл.» соответствует абдукции, а положение «выкл.» — аддукции. Для кривой, отмеченной синей стрелкой, исходные данные внесены в виде красных точек. (Источник данных: [47])
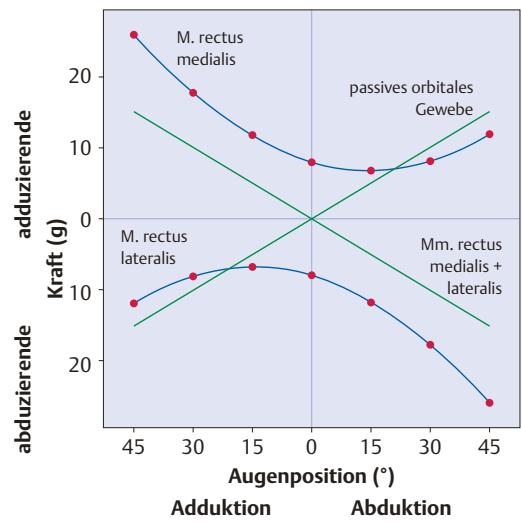
Рис. 1.34 Механика орбитальных тканей. Тяговые силы m. rectus medialis (верхняя кривая) и m. rectus lateralis (нижняя кривая) в зависимости от положения глаза (значения из [12]). Сумма сил обеих мышц представляет собой прямую линию. Обе мышцы вместе уравновешивают пассивные орбитальные ткани.
Запомните
Языком, на котором передаются команды мозга, является частота электрических разрядов, направляемых к мышечным волокнам.
Движение глаз осуществляется за счет противоположных изменений иннервации: иннервация агонистов усиливается, а антагонистов — ослабевает. При горизонтальных движениях глаз иннервация изменяется почти исключительно в m. rectus lateralis и medialis; лишь очень незначительно усиливается иннервация косых мышц глаза при абдукции и прямых мышц-леваторов и депрессоров при аддукции. При вертикальных движениях глаз иннервация изменяется почти исключительно в мышцах-леваторах и депрессорах [27].
На основании МРТ-исследований с высоким разрешением было предположено, что верхние пучки волокон m. rectus medialis могут поддерживать подъем, а нижние пучки волокон m. rectus medialis — опускание глаза [10]. Однако анатомические исследования, проведенные с этим аспектом, показывают, что пучки волокон глазных мышц настолько прочно соединены между собой соединительнотканными перемычками, что дифференцированное сокращение отдельных пучков волокон представляется почти невозможным [43].

Как показано на ▶рис. 1.34, напряжение m. rectus medialis возрастает по мере увеличения аддукции, пока при 45° не достигает значения 25 грамм (около 0,25 N). Напряжение антагонистической m. rectus lateralis при этом сначала снижается и при аддукции 15° достигает минимума в 6 грамм (около 0,06 N). При дальнейшем увеличении аддукции напряжение m. rectus lateralis снова возрастает, так как иннервация этой мышцы при аддукции 15° уже достигла нуля и не может снижаться далее, в то время как тяга m. rectus medialis продолжает растягивать m. rectus lateralis. При абдукции наблюдается зеркальное мышечное напряжение обоих горизонтальных двигателей.
Если определить сумму аддуцирующих и абдуцирующих сил mm. rectus medialis и lateralis в различных положениях глаза, получится прямая с наклоном 0,3 грамм (около 0,003 N) на градус. Эта мышечная сила компенсируется возвращающей пружинной силой пассивных орбитальных тканей. Благодаря этому равновесию сил глаз может неподвижно удерживаться в любом положении взора.
Компьютерно-томографические [55] и магнитно-резонансно-томографические [38] исследования показали, что глазные мышцы в орбитальной воронке остаются в том же положении, даже если их места прикрепления к склере вместе с глазом смещаются из плоскости соответствующей мышцы. Так, например, горизонтальные двигатели при взгляде вверх не смещаются вверх, чтобы следовать кратчайшему пути между началом и прикреплением. Фиксация касается только ретробульбарной части мышц. Из стабильного
расположения мышц в ретробульбарной области следует, что мышцы должны идти под углом, если их прикрепление к склере разворачивается из плоскости соответствующего мышечного брюшка. Так, например, горизонтальные двигатели при взгляде вверх изгибаются вверх (▶рис. 1.27a, b).
Спорным остается вопрос о том, какие структуры обеспечивают стабилизацию ретробульбарного хода мышц. Demer и Miller предполагают наличие петель (pulleys), через которые мышцы проходят и в зависимости от направления взора перенаправляются [13], [39]. В соответствии с этим взглядом Tenon еще в 1805 году на лекции в Париже описал «fasceaux tendineux», которым он приписал функцию перенаправления. Tenon также использовал для этого термин «poulies» [56], [58].
Другого мнения придерживается рабочая группа под руководством Simonsz и Schutte. По их мнению, ретробульбарная стабилизация хода мышцы осуществляется за счет межмышечной мембраны [55] и, в еще большей степени, за счет опорной функции ретробульбарного жира. «Fasceaux tendineux» не могли бы служить в качестве перенаправляющих петель из-за их низкой, подобной сухожилию, эластичности [14], [53], [60]. Кроме того, ориентация «fasceaux tendineux» относительно соответствующей мышечной плоскости не соответствует представлению о том, что они могут стабилизировать ретробульбарный ход мышцы. (Пример: «fasceaux tendineux» не способны предотвратить смещение горизонтальных двигателей вверх при взгляде вверх). Скорее, задачей «fasceaux tendineux» является предотвращение чрезмерного вращения глазного яблока и, следовательно, слишком сильного перегиба зрительного нерва. Таким образом, по мнению Simonsz и Schutte, «fasceaux tendineux» являются не «poulies» или Pulleys, а удерживающими связками (check-ligaments).