Зрительный тракт
Волокна, выходящие из зрительного перекреста, проходят по окружности вокруг промежуточного мозга латеральнее гипоталамуса и контактируют с амбиентной цистерной (см. рис. 1-13). Отсутствие близости между соответствующими волокнами от правого и левого глаз объясняет неконгруэнтный характер дефектов поля зрения при поражении зрительного тракта. Непосредственно перед LGN волокна, участвующие в пупиллярных путях, отходят к претектальным ядрам; другие волокна отходят к поверхностным слоям верхних холмиков (SC) через brachium SC. Эти волокна, которые берут начало в ipRGC, вероятно, являются единственным источником пупилломоторного сигнала от сетчатки к среднему мозгу. ipRGC также проецируются на супрахиазматическое ядро гипоталамуса, которое, вероятно, отвечает за индуцированные светом суточные ритмы. Большинство аксонов, берущих начало в RGC, заканчиваются в LGN.
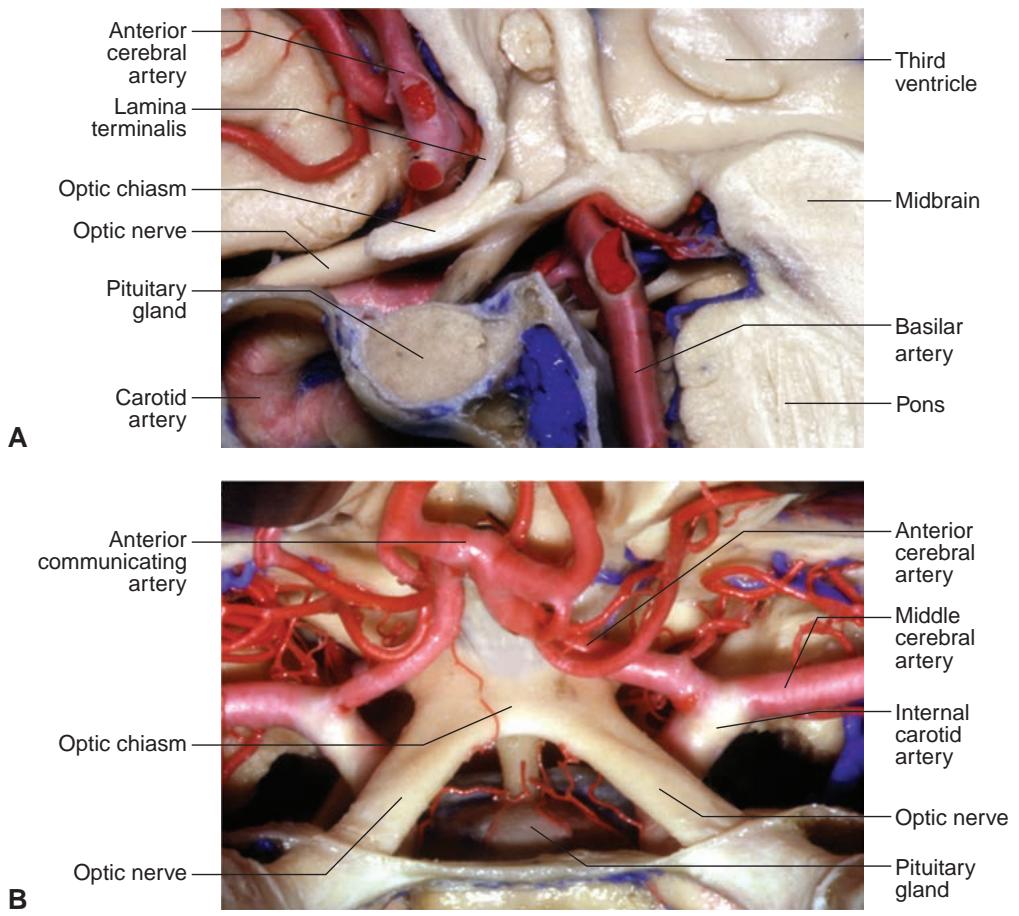
Рисунок 1-23 Анатомическая диссекция зрительного перекреста и окружающих структур. A, Сагиттальный вид. B, Верхний вид. (Предоставлено Albert L. Rhoton Jr, MD.)
LGN располагается в задней части таламуса ниже и латеральнее пульвинара и выше латерального рецессуса амбиентной цистерны. Эта остроконечная структура грибовидной формы разделена на 6 уровней (см. рисунок 3-9 в BCSC Section 2, Fundamentals and Principles of Ophthalmology): аксоны, берущие начало в контралатеральном глазу, заканчиваются в 1, 4 и 6 слоях LGN. Аксоны из ипсилатерального глаза заканчиваются во 2, 3 и 5 слоях.
Два нижних слоя (слои 1 и 2) получают сигнал от волокон M-клеток — ганглионарных клеток с более крупными рецептивными полями, чувствительными к обнаружению движения.
Четыре верхних уровня (слои 3, 4, 5 и 6) являются терминалями аксонов P-клеток — ганглионарных клеток с более мелкими рецептивными полями, отвечающими за обеспечение максимального пространственного разрешения и цветовосприятия.
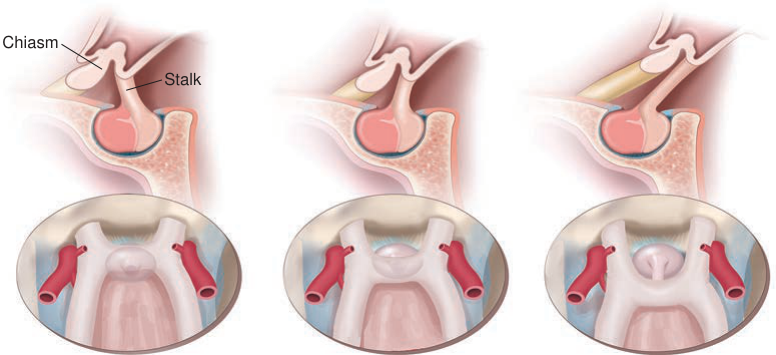
Рисунок 1-24 Положение зрительного перекреста по отношению к турецкому седлу. (Иллюстрация Rob Flewell, CMI.)
Префиксный
Нормальный
Постфиксный
(нормальная конфигурация: 85%)
По мере приближения волокон к LGN ретинальная репрезентация поворачивается почти 90°, при этом верхние волокна смещаются медиально, а нижние — латерально. Макулярные волокна имеют тенденцию смещаться суперлатерально. Корковые и субкорковые пути могут модулировать активность в LGN. Кроме того, кора, SC и претектальные ядра проецируются обратно в LGN.
Кора
После синапса в LGN аксоны направляются кзади в виде зрительных лучистостей, которые заканчиваются в первичной зрительной (калькариновой) коре в затылочной доле (рис. 1-25). Самые нижние волокна сначала идут вперед, затем латерально и назад, образуя петлю вокруг височного рога боковых желудочков (называемую петлей Мейера). Верхние волокна идут назад через глубокое белое вещество теменной доли. Макулярные (центральные) волокна проходят латерально, в то время как периферические волокна более сконцентрированы в верхних и нижних отделах лучистостей.
Повреждение волокон внутри лучистости вызывает гомонимную гемианопсию — контралатеральный дефект поля зрения, который соблюдает вертикальную срединную линию. Если соответствующие волокна от двух глаз расположены близко друг к другу, дефект поля зрения в каждом глазу идентичен, или конгруэнтен. Конгруэнтные дефекты поля зрения возникают в результате поражений в калькариновой коре. Более переднее вовлечение часто вызывает неконгруэнтные дефекты поля зрения, что позволяет предположить, что соответствующие волокна расположены дальше друг от друга более спереди в зрительных путях.
Первичная зрительная кора (известная также как V1, полосатая кора или поле Бродмана 17) расположена вдоль горизонтальной калькариновой щели, которая разделяет медиальную поверхность затылочной доли. Волокна зрительных лучистостей заканчиваются в четвертом из 6 слоев первичной зрительной коры. Волокна из височного полумесяца, или самой латеральной части поля зрения (берущие начало только в контралатеральном глазу), заканчиваются наиболее спереди (рис. 1-26). Макулярные волокна заканчиваются более кзади.

Рисунок 1-25 Схема зрительных лучистостей, сагиттальный вид. Нижние волокна (обеспечивающие верхнее поле зрения) идут вперед, прежде чем повернуть назад в височной доле. Верхние волокна (обеспечивающие нижнее поле зрения) идут дорсально в теменной доле, чтобы закончиться в затылочной доле выше калькариновой щели. (Перерисовано с разрешения University of Texas at Dallas. Иллюстрация Mark Miller.)
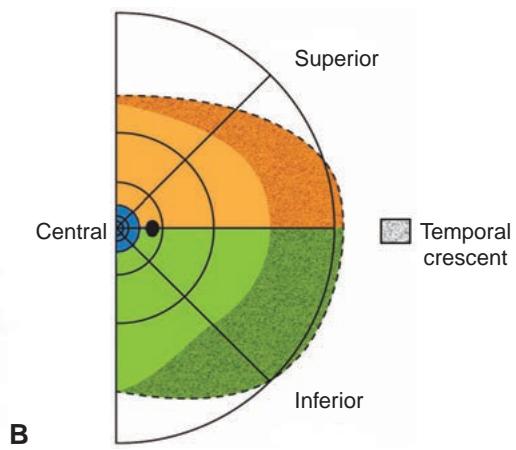
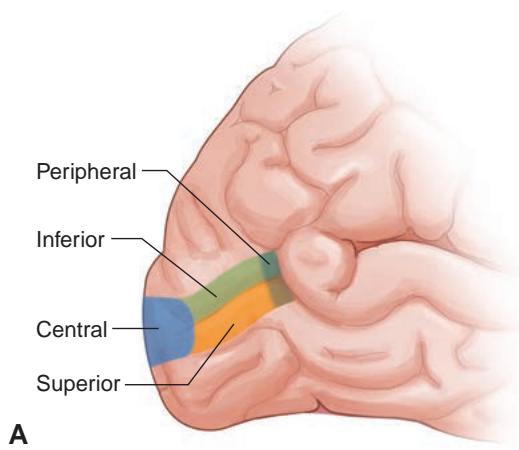
Рисунок 1-26 Первичная зрительная кора и соответствующая репрезентация поля зрения. A, Левая затылочная кора, показывающая расположение полосатой коры внутри калькариновой щели. Синим цветом обозначена макула (центральное поле зрения); зеленым — нижнее поле зрения; оранжевым — верхнее поле зрения. Самые периферические волокна представлены пунктирными цветами. B, Правая половина поля зрения соответствует областям полосатой коры на рис. A. Пунктирная область соответствует монокулярному височному полумесяцу, который картируется в самых передних примерно 8% полосатой коры. Черная точка = физиологическое слепое пятно. (Иллюстрации Christine Gralapp.)
Кора в значительной степени ориентирована на центральную ретинальную активность: 50%–60% коры реагируют на активность в пределах центральных 10° и примерно 80% посвящено макулярной активности (в пределах 30°).
Верхняя часть коры продолжает получать информацию из нижнего поля зрения в ретинотопическом распределении. Такое ретинотопическое картирование на всем протяжении афферентных зрительных путей позволяет локализовать поражения на основании дефектов поля зрения. Антеромедиальная часть полосатой коры представляет дальнее монокулярное височное поле зрения (височный полумесяц) контралатерального глаза. Таким образом, дефект дальнего монокулярного височного поля зрения локализует поражение в контралатеральной передней затылочной коре (см. рис. 1-26).