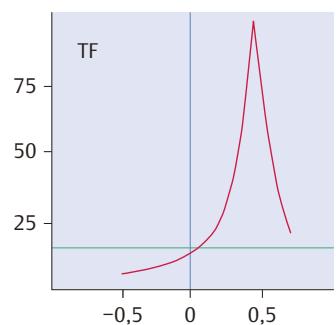
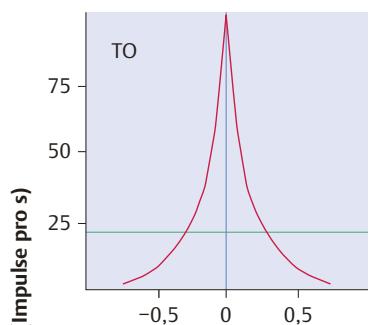
Abb. 1.80 Schematische Darstellung der Erregungsprofile von Stereoneuronen in V1, V2 und V3 in Abhängigkeit von der Reizdisparität (siehe Text). Die horizontalen grünen Linien zeigen das Erregungsniveau bei monokularer Stimulation. Liegt die Kurve darunter, ist die Zelle bei der jeweiligen Disparität gehemmt (TN-Neurone und NE-Neurone haben spiegelbildliche Profile zu den dargestellten TF- und FA-Neuronen). Darstellung nach den Befunden am wachen Affen [148].

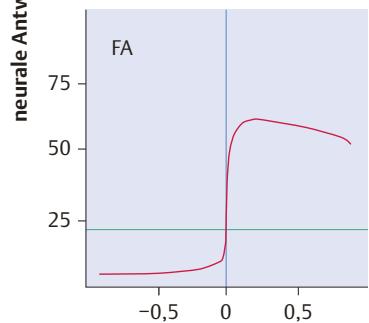
horizontale Disparität (°)
Etwa 20 % der für Linien- und Balkenstereogramme sensitiven Neurone sowie ein Teil der Flachneurone reagieren auf gleiche Disparitäten in einem Random-Dot- Stereogramm. Diese Zellen haben fast ausschließlich komplexe RF-Eigenschaften.
Für die im psychophysischen Experiment selektiv adaptierbaren Sonderformen der Stereopsis, die Orientierungsdisparität [188] und die Tiefenbewegung [147], konnten in V1 und V2 Neurone nachgewiesen werden, die selektiv auf einen der beiden Stereoreize reagieren.
Merke
Die Anzahl exzitatorischer und inhibitorischer Neurone für ein schmales Disparitätsareal ist am höchsten im Bereich des Horopters (für die Katze: Nikara et al. [128]; für den Affen: Poggio und Fischer [146]). Vor und hinter dem Horopter lassen sich stereoempfindliche Neurone zunehmend seltener nachweisen.
Die Häufigkeit der optimalen Reizdisparitäten ist also um die Disparität Null statistisch verteilt (▶Abb. 1.81). Die Breite einer solchen Verteilungskurve stellt somit das Korrelat des Panum-Areals dar. Wird ein bestimmter Disparitätsgrad der Abbildung überschritten, stehen im visuellen Kortex nicht mehr genügend Stereoneurone zur Verfügung, um eine sensorische Fusion zu ermöglichen. Der Reiz wird doppelt wahrgenommen, selbst wenn noch eine geringe Zahl von Neuronen auf die vorgegebene Disparität anspricht und eine vage Vorstellung von „davor“ oder „dahinter“ vermitteln sollte (stereoskopische Wahrnehmung von Doppelbildern). Elektrophysiologisch könnte der Horopter demnach als der Reizort im Außenraum definiert werden, der eine maximale Anzahl binokularer kortikaler Neurone erregt [18]. Dies entspricht der ebenfalls von Bishop aufgestellten Definition der monokularen Fixation. Das Auge ist dabei auf einen Objektpunkt gerichtet, der ein Maximum an rezeptiven Feldern (also auch von kortikalen Neuronen) erregt. Es liegt deshalb nahe, anzunehmen, dass die Maximierung der Anzahl erregter visueller Neurone ein Grundprinzip der mono- und binokularen Steuerung der Augenstellung darstellt [54]. Richtung und Ausmaß notwendiger Vergenzbewegungen würden dann durch das spezifische Erregungsprofil der verschiedenen Disparitätsdetektoren bestimmt. In der Tat gelingt es, die Fusion einfach strukturierter Objekte durch Überlagerung mit disparat angebotenen Random-Dot-Mustern (die hochkomplex sind) zum Abreißen zu bringen, so dass das ursprünglich fusionierte Objekt doppelt und das viele Neurone ansprechende Random-Dot-Muster binokular einfach gesehen wird [54].
Die zahlreichen Einzelbefunde zur Funktion der verschiedenen Zellen der Sehrinde beim wachen Affen zeigen, dass das visuelle System der Primaten über das Rüstzeug verfügt, alle Einzelheiten eines retinalen Bildes zu analysieren. Dabei erfolgt die Analyse in funktionell verschiedenen retinotopisch angeordneten Neuronengruppen, die für die Bearbeitung der einzelnen Bildeigenschaften spezialisiert sind. Die durchschnittlich zunehmende Größe der RF in der Reihe der visuellen Areale von V1–V5 und die Koppelung der „Spezialisten“ in den verschiedenen Arealen über „Kanäle“ wie das magno- und parvozelluläre System legen den Schluss nahe, dass in V1 neben der Aufnahme von Signalen das Auflösungsvermögen und in den extrastriären Arealen die Bearbeitung zusammenhängender Funktionen repräsentiert ist [195], [196].
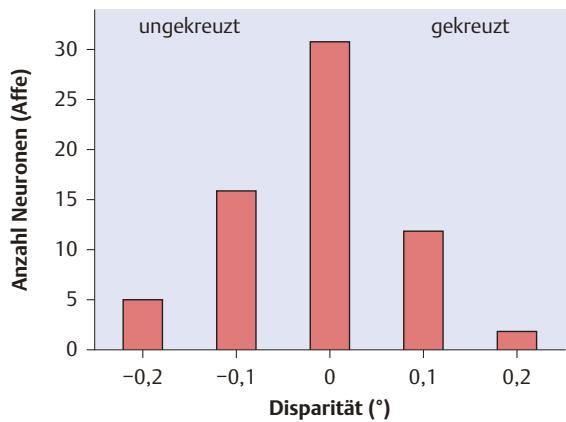
Abb. 1.81 Häufigkeit optimaler Stimulusdisparitäten von T0- Neuronen im zentralen Gesichtsfeld beim Affen (n = 80 in V1 und V2). Die einzelnen Balken stehen für Neurone innerhalb des unterschiedlichen Disparitätsbereichs. Das Diagramm zeigt, dass diejenigen Neurone am häufigsten sind, die durch korrespondent abgebildete Reize am stärksten erregt werden, also das neuronale Substrat des Horopters bilden. Die Anzahl der Neurone, deren rezeptive Felder (RF) eine gekreuzte (rechts) oder ungekreuzte (links) Disparität zeigen, nimmt mit dem Ausmaß der Disparität ab. Der Bereich zwischen den maximalen Disparitäten entspricht psychophysisch dem Panum-Areal. Die Form der Kurve scheint einer Gauss-Verteilung (Glockenkurve der statistischen Normalverteilung) der RF-Disparitäten zu entsprechen. Die Darstellung basiert auf Befunden von Poggio und Fischer [146].
Wie aber bei den vielen anatomischen Synapsen die Wahrnehmung des Bildes unserer Umwelt schließlich zustandekommt, ist bislang unklar. Neuere Befunde weisen darauf hin, dass räumlich getrennte Neuronengruppen, die ein Objekt im Gesichtsfeld analysieren, durch Synchronisation ihrer Entladungen zu einem Ensemble verbunden werden (Übersicht in [45]). Durch zeitlich unterschiedliche Entladungsmuster könnte so die Abgrenzung einzelner Objekte von ihrem Hintergrund erfolgen. Eine derartige Zeitkodierung lässt sich bei der Katze auch für Neurone des rechten und linken Auges nachweisen, die dasselbe Bild analysieren, wenn normales Binokularsehen besteht. Die Synchronisation fehlt jedoch bei schielenden Tieren.
Als morphologisches Substrat der Synchronisation lassen sich im visuellen Kortex weitreichende horizontale Fasern (Long-ranging horizontal Fibers) nachweisen, die die Information weit auseinander liegender Gesichtsfeldorte integrieren [114]. Diese Fasern verbinden bei normalen Versuchstieren rechts- und linksäugig dominante Neurone gleichermaßen. Bei schielenden Tieren koppeln sie fast ausschließlich Neurone derselben Äugigkeit [117].