1.2.2 Innervation der Augenmuskeln
Die Augenmuskeln werden von den Kernen dreier Hirnnerven angesteuert. Der Nucleus oculomotorius (III. Hirnnerv) versorgt den M. rectus medialis, den M. rectus superior, den M. rectus inferior und den M. obliquus inferior (außerdem den M. levator palpebrae sowie – mit seinem parasympathischen Anteil – den M. ciliaris und den M. sphincter pupillae). Der Nucleus trochlearis (IV. Hirnnerv) versorgt den M. obliquus superior, der Nucleus abducens (VI. Hirnnerv) den M. rectus lateralis.
In jeden Augenmuskel ziehen etwa 1000 Nervenfasern, die sich im Augenmuskel verzweigen und jeweils etwa 4–40 Muskelfasern versorgen [41]. Die Gesamtheit aller Muskelfasern, welche von einer Nervenfaser angesteuert werden, bezeichnet man als motorische Einheit.
Das Gehirn nutzt 2 verschiedene Möglichkeiten, um die Zugkraft eines Muskels zu steigern:
Es verstärkt die Aktivität motorischer Einheiten.
Es setzt neue motorische Einheiten ein, die zuvor noch ruhten.
Dies sei am Beispiel des M. rectus lateralis erläutert (▶Abb. 1.33). In der Aus-Position, d. h. bei extremer Adduktion, ruhen fast alle motorischen Einheiten. Indem nach und nach weitere motorische Einheiten zugeschaltet werden, gelangt der Bulbus allmählich in die An-Position, bis in extremer Abduktionsstellung fast alle motorischen Einheiten aktiviert sind. Bei Wiederholung des Bewegungsablaufs wird jede motorische Einheit immer wieder ab der ihr zugeordneten Augenposition eingesetzt, also ab ihrer Schwelle. Niederschwellige motorische Einheiten arbeiten bereits in der nasalen Blickfeldhälfte, hochschwellige erst in der temporalen.
In der extremen An-Position erreichen die meisten motorischen Einheiten eine Frequenz von etwa 300 Entladungen pro Sekunde. Während großer Sakkaden kann die Frequenz auf 600 Entladungen pro Sekunde ansteigen.
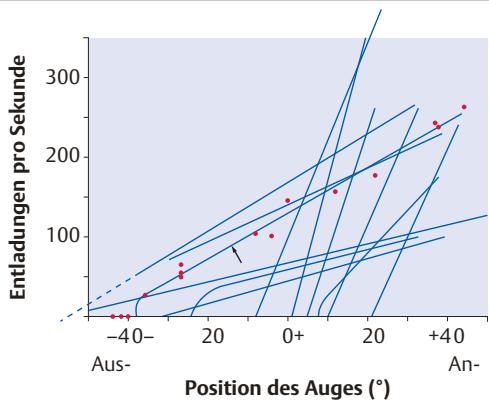
Abb. 1.33 Abhängigkeit der Entladungsrate einzelner motorischer Einheiten von der Augenposition . Jede Einheit beginnt in einer für sie spezifischen Schwellenposition zu arbeiten. Die Aktivität steigt, je weiter das Auge in das Wirkungsfeld des betreffenden Muskels gelangt. 0° bedeutet Mittelposition. Beim M. rectus lateralis entspricht die „An“-Position der Abduktion und die „Aus“-Position der Adduktion. Für die mit einem blauen Pfeil markierte Kurve sind die Originaldaten als rote Punkte eingetragen. (Datenquelle: [47])
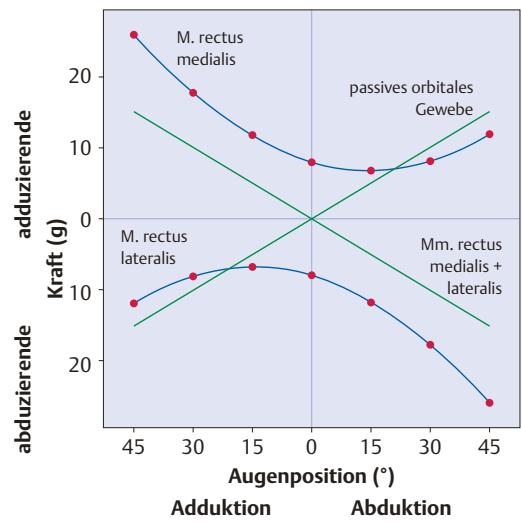
Abb. 1.34 Mechanik der orbitalen Gewebe. Zugkräfte des M. rectus medialis (obere Kurve) und des M. rectus lateralis (untere Kurve) in Abhängigkeit von der Augenposition (Werte aus [12]). Die Summe der Kräfte beider Muskeln ergibt eine Gerade. Beide Muskeln zusammen halten den passiven orbitalen Geweben die Waage.
Merke
Die Sprache, in der die Befehle des Gehirns übermittelt werden, ist die Frequenz der elektrischen Entladungen, die zu den Muskelfasern geleitet werden.
Bewegt werden die Augen durch gegenläufige Innervationsänderungen: Die Innervation der Agonisten wird verstärkt, die der Antagonisten vermindert. Bei horizontalen Augenbewegungen wird die Innervation fast ausschließlich in den Mm. rectus lateralis und medialis geändert; nur sehr gering ist die Innervationsverstärkung der schrägen Augenmuskeln bei Abduktion und der geraden Heber und Senker bei Adduktion. Bei vertikalen Augenbewegungen wird die Innervation fast ausschließlich in den Hebern und Senkern verändert [27].
Aufgrund hochauflösender MRT-Untersuchungen wurde angenommen, dass die oberen Faserbündel des M. rectus medialis die Hebung, die unteren Faserbündel des M. rectus medialis die Senkung des Auges unterstützen könnten [10]. Allerdings zeigen unter diesem Aspekt durchgeführte anatomische Studien, dass die Faserbündel der Augenmuskeln durch Bindegewebsbrücken so fest miteinander verbunden sind, dass eine unterschiedliche Kontraktion einzelner Faserbündel kaum möglich erscheint [43].

Wie ▶Abb. 1.34 zeigt, steigt die Spannung des M. rectus medialis mit zunehmender Adduktion an, bis sie bei 45° einen Wert von 25 Gramm (etwa 0,25 N) erreicht. Die Spannung des antagonistischen M. rectus lateralis nimmt dabei zunächst ab und erreicht bei 15° Adduktion ein Minimum von 6 Gramm (etwa 0,06 N). Bei weiterer Adduktion steigt die Spannung des M. rectus lateralis wieder an, weil die Innervation dieses Muskels bei 15° Adduktion schon bei Null angekommen ist und nicht weiter absinken kann, während der Zug des M. rectus medialis den M. rectus lateralis weiter dehnt. Bei der Abduktion zeigen sich spiegelbildliche Muskelspannungen der beiden Horizontalmotoren.
Bestimmt man die Summe der adduzierenden und abduzierenden Kräfte der Mm. rectus medialis und lateralis in den verschiedenen Augenpositionen, so ergibt sich eine Gerade mit der Steigung 0,3 Gramm (etwa 0,003 N) pro Grad. Diese muskuläre Kraft wird durch die Rückstellfederkraft der passiven orbitalen Gewebe aufgehoben. Aufgrund dieses Gleichgewichts der Kräfte kann das Auge in jeder Blickposition ruhig gehalten werden.
Computertomografische [55] und kernspintomografische [38] Untersuchungen haben gezeigt, dass die Augenmuskeln im Orbitatrichter in derselben Lage verbleiben, auch wenn sich ihre Ansätze an der Sklera mit dem Auge aus der Ebene des jeweiligen Muskels herausbewegen. So rutschen z. B. die Horizontalmotoren bei Aufblick nicht etwa nach oben, um dem kürzesten Weg zwischen Ursprung und Ansatz zu folgen. Die Fixierung betrifft nur den retrobulbären Anteil der Muskeln. Aus der stabilen
Ausrichtung der Muskeln im retrobulbären Bereich folgt, dass die Muskeln abgewinkelt verlaufen müssen, wenn ihr Ansatz an der Sklera aus der Ebene des jeweiligen Muskelbauchs herausgedreht wird. So knicken etwa die Horizontalmotoren bei Aufblick nach oben ab (▶Abb. 1.27a, b).
Umstritten ist, welche Strukturen die Stabilisierung des retrobulbären Muskelverlaufs bewirken. Demer und Miller vermuten Schlaufen (Pulleys), durch welche die Muskeln geführt und je nach Blickrichtung umgelenkt werden [13], [39]. Dieser Auffassung entsprechend hat Tenon schon 1805 bei einem Vortrag in Paris „fasceaux tendineux“ beschrieben, denen er eine Umlenkfunktion zuschrieb. Auch Tenon benutzte dafür schon den Ausdruck „poulies“ [56], [58].
Anderer Auffassung ist die Arbeitsgruppe um Simonsz und Schutte. Nach ihnen erfolgt die retrobulbäre Stabilisierung des Muskelverlaufs durch die intermuskuläre Membran [55] und mehr noch durch die Stützfunktion des retrobulbären Fettes. Die „fasceaux tendineux“ könnten wegen ihrer sehnenartig geringen Elastizität nicht als Umlenkschlaufen dienen [14], [53], [60]. Auch passe die Ausrichtung der „fasceaux tendineux“ auf die jeweilige Muskelebene nicht zu der Vorstellung, sie könnten den retrobulbären Muskelverlauf stabilisieren. (Beispiel: Die „fasceaux tendineux“ seien nicht in der Lage, im Aufblick ein Abrutschen der Horizontalmotoren nach oben zu verhindern.) Vielmehr sei es die Aufgabe der „fasceaux tendineux“, eine übermäßige Drehung des Bulbus und damit eine zu starke Knickung des Sehnervs zu verhindern. Nach Simonsz und Schutte handelt es sich bei den „fasceaux tendineux“ also nicht um „poulies“ bzw. Pulleys, sondern um Check-Ligamente.