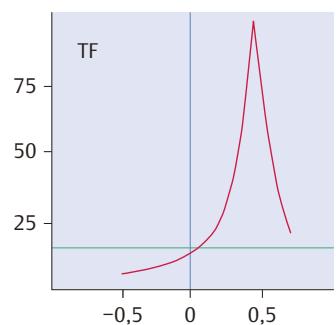
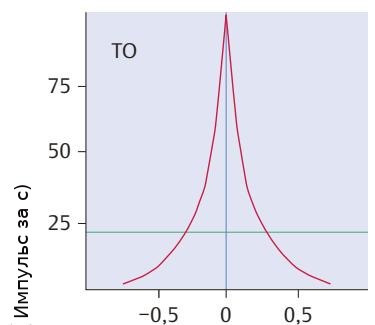
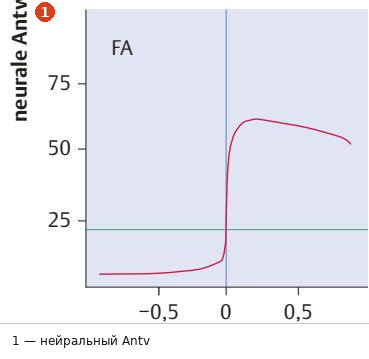
Рис. 1.80 Схематическое изображение профилей возбуждения стереонейронов в V1, V2 и V3 в зависимости от диспаратности стимула (см. текст). Горизонтальные зеленые линии показывают уровень возбуждения при монокулярной стимуляции. Если кривая находится ниже, клетка при данной диспаратности тормозится (нейроны TN и нейроны NE имеют зеркальные профили по отношению к представленным нейронам TF и FA). Изображение основано на данных, полученных на бодрствующей обезьяне [148].
Abb. 1.80 Schematische Darstellung der Erregungsprofile von Stereoneuronen in V1, V2 und V3 in Abhängigkeit von der Reizdisparität (siehe Text). Die horizontalen grünen Linien zeigen das Erregungsniveau bei monokularer Stimulation. Liegt die Kurve darunter, ist die Zelle bei der jeweiligen Disparität gehemmt (TN-Neurone und NE-Neurone haben spiegelbildliche Profile zu den dargestellten TF- und FA-Neuronen). Darstellung nach den Befunden am wachen Affen [148].

горизонтальная диспаратность (°)
horizontale Disparität (°)
Около 20 % нейронов, чувствительных к линейным и полосовым стереограммам, а также часть плоских нейронов реагируют на те же диспаратности в стереограмме с рандомными точками (Random-Dot-Stereogramm). Эти клетки обладают почти исключительно комплексными свойствами РП.
Etwa 20 % der für Linien- und Balkenstereogramme sensitiven Neurone sowie ein Teil der Flachneurone reagieren auf gleiche Disparitäten in einem Random-Dot- Stereogramm. Diese Zellen haben fast ausschließlich komplexe RF-Eigenschaften.
Для особых форм стереопсиса, которые селективно адаптируются в психофизическом эксперименте, а именно для ориентационной диспаратности [188] и глубинной кинетики [147], в V1 и V2 были обнаружены нейроны, которые селективно реагируют на один из двух стереостимулов.
Für die im psychophysischen Experiment selektiv adaptierbaren Sonderformen der Stereopsis, die Orientierungsdisparität [188] und die Tiefenbewegung [147], konnten in V1 und V2 Neurone nachgewiesen werden, die selektiv auf einen der beiden Stereoreize reagieren.
Запомните
Merke
Количество возбуждающих и тормозных нейронов для узкой области диспаратности максимально в области гороптера (для кошки: Nikara et al. [128]; для обезьяны: Poggio и Fischer [146]). Перед и за гороптером стереочувствительные нейроны обнаруживаются все реже.
Die Anzahl exzitatorischer und inhibitorischer Neurone für ein schmales Disparitätsareal ist am höchsten im Bereich des Horopters (für die Katze: Nikara et al. [128]; für den Affen: Poggio und Fischer [146]). Vor und hinter dem Horopter lassen sich stereoempfindliche Neurone zunehmend seltener nachweisen.
Таким образом, частота оптимальных диспаратности стимулов статистически распределена вокруг нулевой диспаратности (▶Рис. 1.81). Ширина такой кривой распределения представляет собой коррелят области Панума. Если определенная степень диспаратности изображения превышается, в зрительной коре становится недостаточно стереонейронов для обеспечения сенсорного слияния. Стимул воспринимается двоенно, даже если небольшое число нейронов все еще реагирует на заданную диспаратность и должно передавать смугое представление о положении «перед» или «за» (стереоскопическое восприятие двойных изображений). С электрофизиологической точки зрения гороптер может быть определен как точка стимула во внешнем пространстве, которая возбуждает максимальное количество бинокулярных корковых нейронов [18]. Это соответствует определению монокулярной фиксации, также сформулированному Bishop. При этом глаз направлен на точку объекта, которая возбуждает максимум рецептивных полей (и, следовательно, корковых нейронов). Поэтому представляется обоснованным предположение, что максимизация числа возбужденных зрительных нейронов является основным принципом монокулярного и бинокулярного управления положением глаз [54]. Направление и величина необходимых конвергентных движений в таком случае определялись бы специфическим профилем возбуждения различных детекторов диспаратности. Действительно, удается добиться разрыва слияния простых структурированных объектов путем наложения диспаратных паттернов из случайных точек (Random-Dot-patterns), которые являются высокосложными, так что изначально слитый объект воспринимается двоенно, а паттерн из случайных точек, активирующий множество нейронов, воспринимается бинокулярно одинаково [54].
Die Häufigkeit der optimalen Reizdisparitäten ist also um die Disparität Null statistisch verteilt (▶Abb. 1.81). Die Breite einer solchen Verteilungskurve stellt somit das Korrelat des Panum-Areals dar. Wird ein bestimmter Disparitätsgrad der Abbildung überschritten, stehen im visuellen Kortex nicht mehr genügend Stereoneurone zur Verfügung, um eine sensorische Fusion zu ermöglichen. Der Reiz wird doppelt wahrgenommen, selbst wenn noch eine geringe Zahl von Neuronen auf die vorgegebene Disparität anspricht und eine vage Vorstellung von „davor“ oder „dahinter“ vermitteln sollte (stereoskopische Wahrnehmung von Doppelbildern). Elektrophysiologisch könnte der Horopter demnach als der Reizort im Außenraum definiert werden, der eine maximale Anzahl binokularer kortikaler Neurone erregt [18]. Dies entspricht der ebenfalls von Bishop aufgestellten Definition der monokularen Fixation. Das Auge ist dabei auf einen Objektpunkt gerichtet, der ein Maximum an rezeptiven Feldern (also auch von kortikalen Neuronen) erregt. Es liegt deshalb nahe, anzunehmen, dass die Maximierung der Anzahl erregter visueller Neurone ein Grundprinzip der mono- und binokularen Steuerung der Augenstellung darstellt [54]. Richtung und Ausmaß notwendiger Vergenzbewegungen würden dann durch das spezifische Erregungsprofil der verschiedenen Disparitätsdetektoren bestimmt. In der Tat gelingt es, die Fusion einfach strukturierter Objekte durch Überlagerung mit disparat angebotenen Random-Dot-Mustern (die hochkomplex sind) zum Abreißen zu bringen, so dass das ursprünglich fusionierte Objekt doppelt und das viele Neurone ansprechende Random-Dot-Muster binokular einfach gesehen wird [54].
Многочисленные отдельные данные о функции различных клеток зрительной коры у бодрствующей обезьяны показывают, что зрительная система приматов обладает инструментарием для анализа всех деталей ретинального изображения. При этом анализ осуществляется в функционально различных ретинотопически расположенных группах нейронов, специализирующихся на обработке отдельных свойств изображения. В среднем увеличивающийся размер RF в ряду зрительных областей от V1 до V5 и связь «специалистов» в различных областях через «каналы», такие как магнито- и парвоцеллюлярная системы, позволяют сделать вывод, что в V1, помимо приема сигналов, представлена разрешающая способность, а в экстрастриарных областях — обработка взаимосвязанных функций [195], [196].
Die zahlreichen Einzelbefunde zur Funktion der verschiedenen Zellen der Sehrinde beim wachen Affen zeigen, dass das visuelle System der Primaten über das Rüstzeug verfügt, alle Einzelheiten eines retinalen Bildes zu analysieren. Dabei erfolgt die Analyse in funktionell verschiedenen retinotopisch angeordneten Neuronengruppen, die für die Bearbeitung der einzelnen Bildeigenschaften spezialisiert sind. Die durchschnittlich zunehmende Größe der RF in der Reihe der visuellen Areale von V1–V5 und die Koppelung der „Spezialisten“ in den verschiedenen Arealen über „Kanäle“ wie das magno- und parvozelluläre System legen den Schluss nahe, dass in V1 neben der Aufnahme von Signalen das Auflösungsvermögen und in den extrastriären Arealen die Bearbeitung zusammenhängender Funktionen repräsentiert ist [195], [196].
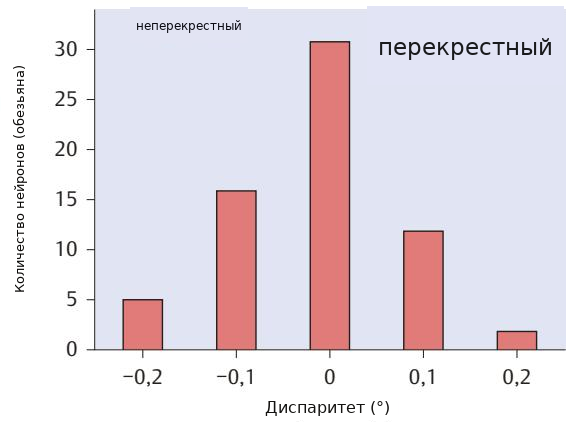
Рис. 1.81 Частота оптимальных диспаратности стимулов T0-нейронов в центральном поле зрения у обезьяны (n = 80 в V1 и V2). Отдельные столбцы соответствуют нейронам в различных диапазонах диспаратности. Диаграмма показывает, что наиболее часто встречаются те нейроны, которые сильнее всего возбуждаются стимулами с соответствующим отображением, то есть формируют нейронный субстрат гороптера. Количество нейронов, чьи рецептивные поля (RF) демонстрируют перекрестную (справа) или неперекрестную (слева) диспаратность, уменьшается с увеличением величины диспаратности. Область между максимальными диспаратностями психофизически соответствует области Панума. Форма кривой, по-видимому, соответствует распределению Гаусса (колоколообразная кривая статистического нормального распределения) диспаратности RF. Изображение основано на данных Poggio и Fischer [146].
Abb. 1.81 Häufigkeit optimaler Stimulusdisparitäten von T0- Neuronen im zentralen Gesichtsfeld beim Affen (n = 80 in V1 und V2). Die einzelnen Balken stehen für Neurone innerhalb des unterschiedlichen Disparitätsbereichs. Das Diagramm zeigt, dass diejenigen Neurone am häufigsten sind, die durch korrespondent abgebildete Reize am stärksten erregt werden, also das neuronale Substrat des Horopters bilden. Die Anzahl der Neurone, deren rezeptive Felder (RF) eine gekreuzte (rechts) oder ungekreuzte (links) Disparität zeigen, nimmt mit dem Ausmaß der Disparität ab. Der Bereich zwischen den maximalen Disparitäten entspricht psychophysisch dem Panum-Areal. Die Form der Kurve scheint einer Gauss-Verteilung (Glockenkurve der statistischen Normalverteilung) der RF-Disparitäten zu entsprechen. Die Darstellung basiert auf Befunden von Poggio und Fischer [146].
Однако до сих пор неясно, как в конечном итоге из множества анатомических синапсов формируется восприятие изображения нашей окружающей среды. Более новые данные указывают на то, что пространственно разделенные группы нейронов, анализирующие объект в поле зрения, объединяются в ансамбль за счет синхронизации своих разрядов (обзор в [45]). Таким образом, за счет различных во времени паттернов разрядов может происходить отделение отдельных объектов от их фона. Подобное временное кодирование можно обнаружить также у кошки для нейронов правого и левого глаза, которые анализируют одно и то же изображение при наличии нормального бинокулярного зрения. Однако при косоглазии у животных синхронизация отсутствует.
Wie aber bei den vielen anatomischen Synapsen die Wahrnehmung des Bildes unserer Umwelt schließlich zustandekommt, ist bislang unklar. Neuere Befunde weisen darauf hin, dass räumlich getrennte Neuronengruppen, die ein Objekt im Gesichtsfeld analysieren, durch Synchronisation ihrer Entladungen zu einem Ensemble verbunden werden (Übersicht in [45]). Durch zeitlich unterschiedliche Entladungsmuster könnte so die Abgrenzung einzelner Objekte von ihrem Hintergrund erfolgen. Eine derartige Zeitkodierung lässt sich bei der Katze auch für Neurone des rechten und linken Auges nachweisen, die dasselbe Bild analysieren, wenn normales Binokularsehen besteht. Die Synchronisation fehlt jedoch bei schielenden Tieren.
В качестве морфологического субстрата синхронизации в зрительной коре можно обнаружить протяженные горизонтальные волокна (Long-ranging horizontal Fibers), которые интегрируют информацию из далеко расположенных точек поля зрения [114]. У нормальных подопытных животных эти волокна в равной степени соединяют доминантные нейроны правого и левого глаза. У животных с косоглазием они соединяют почти исключительно нейроны с одинаковой глазной доминантой [117].
Als morphologisches Substrat der Synchronisation lassen sich im visuellen Kortex weitreichende horizontale Fasern (Long-ranging horizontal Fibers) nachweisen, die die Information weit auseinander liegender Gesichtsfeldorte integrieren [114]. Diese Fasern verbinden bei normalen Versuchstieren rechts- und linksäugig dominante Neurone gleichermaßen. Bei schielenden Tieren koppeln sie fast ausschließlich Neurone derselben Äugigkeit [117].