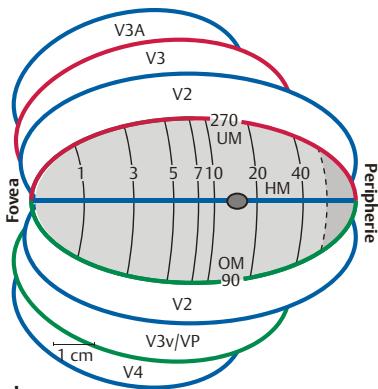
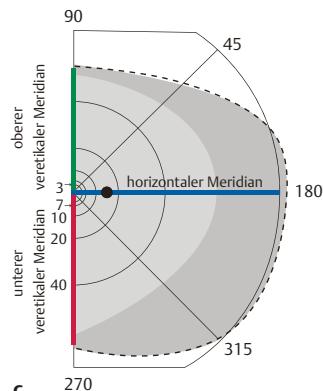
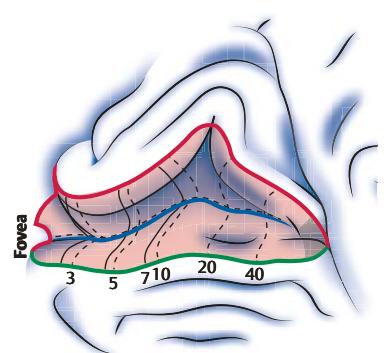
Abb. 1.79 Schematische Darstellung der Innenseite des linken Hinterhauptlappens. Mit partiell entfalteter Fissura calcarina (a), der retinotopen Verteilung auf den flach ausgebreiteten Areae V1, V2, V3, V3v, V3A und V4 (b) und des zugehörigen Gesichtsfelds.
a Die Grenzen der Area V1 zur Area V2 nach oben und unten sind gestrichelt eingezeichnet, die Zahlen an der unteren Linie bezeichnen die Exzentrizität der zugehörigen retinalen rezeptiven Felder.
b Hier ist die Projektion der rechten Gesichtsfeldhälfte beider Augen auf die ausgebreitete visuelle Hirnrinde dargestellt. Der schwarze Fleck auf dem horizontalen Gesichtsfeldmeridian (HM) von V1 entspricht dem blinden Fleck des rechten Auges. Innerhalb von V1 ist die Repräsentation des rechten unteren Gesichtsfeldquadranten über HM, die des rechten oberen Quadranten unter HM gelegen. Die Grenze zwischen V1 und V2 entspricht daher dem vertikalen Gesichtsfeldmeridian. In V3 ist die Gesichtsfeldhälfte wiederum in einen oberen und einen unteren Quadranten aufgeteilt, wobei die Grenzen abwechselnd dem horizontalen und vertikalen Meridian entsprechen.
c Grenzen der in b dargestellten Exzentrizitätslinien und Meridiane im Gesichtsfeld. Der grau markierte Bereich wird nur einäugig wahrgenommen.
Merke

Die neurale Verbindung der einzelnen Areale erfolgt offenbar so, dass die in der Area striata in verschiedenen Schichten ankommenden Botschaften des parvozellulären und des magnozellulären Systems nach Aufbereitung in einer höhergelegenen Schicht von V1 (Konturorientierung) direkt oder über V2 [14] an die nachfolgenden Areale weitergegeben werden:
an V3 zur Analyse von bewegten Formen [6]
an V4 zur Bearbeitung farbiger Konturen
an V5 zur Analyse der Bewegung [33], [107], [164]
Die einzelnen Funktionen sind aber nicht exklusiv an die genannten Felder gebunden. Diese Vorwärtsprojektionen erfolgen retinotopisch mit kleinen rezeptiven Feldern in V1, das deshalb das neurale Substrat der Lokalzeichen und des Auflösungsvermögens darstellt, und in einem immer gröber werdenden Raster in den nachfolgenden Arealen, die damit ihre speziellen Aufgaben von einer höheren Warte aus „global“ erfüllen können. Ein weitverzweigtes, nicht mehr retinotopisch geordnetes System rückläufiger Projektionen könnte nach Zeki die Integration der Informationen in die topografisch präzise organisierte Area V1 ermöglichen. Neuere Arbeiten bei Patienten zeigen, dass wahrscheinlich auch direkte Projektionen in höhere visuelle Areale (z. B. für Bewegungsverarbeitung) unter Umgehung von V1 existieren [73].
Die partielle Kreuzung des Sehnervs im Chiasma und die daraus folgende Teilung in eine rechte Hälfte des visuellen Kortex für die linke Gesichtshälfte und eine linke Hälfte des visuellen Kortex für das rechte Gesichtsfeld macht ein weiteres neuronales System erforderlich, das die Sinneseindrücke der beiden Gesichtsfeldhälften miteinander verbindet. Diese interhemisphärische, kortikokortikale Verbindung erfolgt über das Corpus callosum. Dieses kann in seinem hinteren Anteil visuelle Signale, in den vorderen Teilen andere somatosensorische Funktionen – wie den Tastsinn – mit schnell leitenden markhaltigen Fasern zwischen den Hirnhälften übertrage. Die präzise Topografie und die kleinen RF ermöglichen eine solche Koppelung in V1 natürlich nur in einem schmalen Streifen entlang der vertikalen Trennlinien der Gesichtsfeldhälften. Dies entspricht in V1 den Zellen, die an der Grenze zu V2 liegen. Man konnte dort Zellen nachweisen, deren RF vom vertikalen Meridian des Gesichtsfelds in 2 Hälften geteilt sind, wobei die im Gesichtsfeld kontralaterale Hälfte direkt über die gleichseitige Sehbahn, die im Gesichtsfeld ipsilaterale Hälfte über Vermittlung des Corpus callosum versorgt wurde. In den auf V1 folgenden Arealen, deren retinotope Präzision zugunsten einer generalisierten Bildanalyse geringer wird, nimmt die Überlappung schrittweise zu und kann in V5 bis zu 20° betragen. So ist es auch verständlich, dass Mehdorn [120] sowie Dengler und Kommerell [39] bei Darbietung der symmetrisch um den vertikalen Gesichtsfeldmeridian verteilten Stereobilder Tiefenwahrnehmung bis zu Disparitäten von über 20° (!) beim Menschen nachweisen konnten.
Funktioneller Aufbau der Sehrinde
Die Area striata stellt in aufgefaltetem Zustand eine etwa 2 mm dicke Platte dar. Sie ist mit ihrer anatomisch auffallenden oberflächenparallelen Schichtung in 6 Zelllagen der am genauesten untersuchte Teil der Sehrinde. Die rezeptiven Felder ihrer Neurone haben – bis auf die Eingangsneurone in Schicht IV und die Zellen zur Farbkodierung – keine runde Zentrum-Umfeld-Organisation mehr und sind stattdessen von verschiedener rechteckiger Form mit unterschiedlichen Kriterien für Hemmung und Erregung.
Einfache Zellen (Simple Cells) reagieren auf ruhende und auf bewegte Konturen auf der Netzhaut. Komplexe Zellen (Complex Cells) werden fast ausschließlich durch bewegte Konturen oder intermittierende Reizdarbietung erregt; vor allem ist der Grad der Erregung im Unterschied zu den einfachen Zellen innerhalb des rezeptiven Feldes unabhängig vom Reizort. Die meisten dieser beiden Zelltypen sind orientierungsspezifisch, d. h. sie sind nur erregbar, wenn der Konturenreiz in einem bestimmten Winkel auf die Netzhaut trifft. Ein Teil der Zellen reagiert dabei nur auf eine bestimmte Bewegungsrichtung (Bewegungsspezifität). Unter beiden Zelltypen finden sich Neurone, die nur bei bestimmten Konturenlängen optimal reagieren (sog. Endinhibition, weil eine größere als die optimale Reizlänge zur Hemmung der Zelle führt). Schließlich existieren noch farbspezifische Zellen mit runden RF, die im Unterschied zu den „farbenblinden“ einfachen und komplexen Zellen symmetrisch organisiert und damit nicht orientierungsspezifisch sind.
Zusätzlich wird das Ausmaß der Erregbarkeit kortikaler Neurone nach V2 offenbar noch durch die Blickrichtung moduliert, was als blickrichtungsspezifische Kodierung der egozentrischen Richtungslokalisation gedeutet werden kann [190].
Elektrophysiologische Untersuchungen haben vor allem an der Area striata gezeigt, dass die neuronale Koppelung in erster Linie senkrecht zur Oberfläche erfolgt. In Analogie zum primären somatosensorischen Kortex, für den Mountcastle (1957) bei der Katze eine gleichartige vertikale Organisation fand, wurde von Hubel und Wiesel [89] der Begriff der Kolumne (Säule) übernommen. In einer Linie senkrecht zur Oberfläche angeordnete Zellen zeigen gleichartige optimale Reizbedingungen wie Äugigkeit, Farbe und Orientierung. Ihre rezeptiven Felder entstammen dem gleichen Netzhautareal. Bei einem Schnitt senkrecht zur Oberfläche des primären visuellen Kortex stellt sich diese funktionelle Architektur nach entsprechender Färbung wie aus Säulen zusammengesetzt dar, wobei die einzelnen Säulen verschiedene Funktionen kodieren [98], [110], [137].