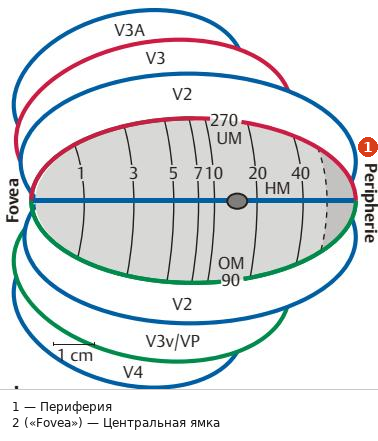
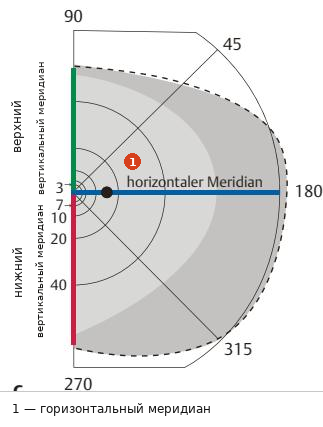
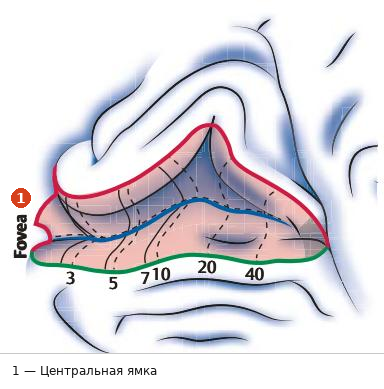
Рис. 1.79 Схематическое изображение внутренней стороны левой затылочной доли. С частично раскрытой fissura calcarina (a), ретинотопическим распределением на распластанных областях V1, V2, V3, V3v, V3A и V4 (b) и соответствующем поле зрения.
Abb. 1.79 Schematische Darstellung der Innenseite des linken Hinterhauptlappens. Mit partiell entfalteter Fissura calcarina (a), der retinotopen Verteilung auf den flach ausgebreiteten Areae V1, V2, V3, V3v, V3A und V4 (b) und des zugehörigen Gesichtsfelds.
a Границы области V1 с областью V2 сверху и снизу обозначены пунктиром; цифры на нижней линии обозначают эксцентриситет соответствующих ретинальных рецептивных полей.
a Die Grenzen der Area V1 zur Area V2 nach oben und unten sind gestrichelt eingezeichnet, die Zahlen an der unteren Linie bezeichnen die Exzentrizität der zugehörigen retinalen rezeptiven Felder.
b Здесь представлена проекция правой половины поля зрения обоих глаз на распластанную зрительную кору. Черное пятно на горизонтальном меридиане поля зрения (HM) от V1 соответствует слепому пятну правого глаза. Внутри V1 репрезентация правого нижнего квадранта поля зрения расположена над HM, а правого верхнего квадранта — под HM. Таким образом, граница между V1 и V2 соответствует вертикальному меридиану поля зрения. В V3 половина поля зрения снова разделена на верхний и нижний квадранты, при этом границы поочередно соответствуют горизонтальному и вертикальному меридианам.
b Hier ist die Projektion der rechten Gesichtsfeldhälfte beider Augen auf die ausgebreitete visuelle Hirnrinde dargestellt. Der schwarze Fleck auf dem horizontalen Gesichtsfeldmeridian (HM) von V1 entspricht dem blinden Fleck des rechten Auges. Innerhalb von V1 ist die Repräsentation des rechten unteren Gesichtsfeldquadranten über HM, die des rechten oberen Quadranten unter HM gelegen. Die Grenze zwischen V1 und V2 entspricht daher dem vertikalen Gesichtsfeldmeridian. In V3 ist die Gesichtsfeldhälfte wiederum in einen oberen und einen unteren Quadranten aufgeteilt, wobei die Grenzen abwechselnd dem horizontalen und vertikalen Meridian entsprechen.
c Границы линий эксцентриситета и меридианов в поле зрения, представленных на рис. b. Серая область воспринимается только одним глазом.
c Grenzen der in b dargestellten Exzentrizitätslinien und Meridiane im Gesichtsfeld. Der grau markierte Bereich wird nur einäugig wahrgenommen.
Запомните
Merke

Нейронная связь отдельных областей, по всей видимости, организована так, что сообщения парвоцеллюлярной и магноцеллюлярной систем, поступающие в различных слоях area striata, после обработки в более высоком слое от V1 (ориентация контура) передаются непосредственно или через V2 [14] в последующие области:
Die neurale Verbindung der einzelnen Areale erfolgt offenbar so, dass die in der Area striata in verschiedenen Schichten ankommenden Botschaften des parvozellulären und des magnozellulären Systems nach Aufbereitung in einer höhergelegenen Schicht von V1 (Konturorientierung) direkt oder über V2 [14] an die nachfolgenden Areale weitergegeben werden:
в V3 для анализа движущихся форм [6]
an V3 zur Analyse von bewegten Formen [6]
в V4 для обработки цветных контуров
an V4 zur Bearbeitung farbiger Konturen
в V5 для анализа движения [33], [107], [164]
an V5 zur Analyse der Bewegung [33], [107], [164]
Однако отдельные функции не привязаны исключительно к указанным полям. Эти антероградные проекции осуществляются ретинотопически с малыми рецептивными полями в V1, что делает ее нейронным субстратом локальных признаков и разрешающей способности, и по все более грубой сетке в последующих областях, что позволяет им выполнять свои специальные задачи «глобально» с более высокого уровня. Обширная система обратных проекций, более не имеющая ретинотопического порядка, может, по мнению Zeki, обеспечивать интеграцию информации в топографически точно организованной области V1. Более современные работы с пациентами показывают, что, вероятно, существуют и прямые проекции в высшие зрительные области (например, для обработки движения) в обход V1 [73].
Die einzelnen Funktionen sind aber nicht exklusiv an die genannten Felder gebunden. Diese Vorwärtsprojektionen erfolgen retinotopisch mit kleinen rezeptiven Feldern in V1, das deshalb das neurale Substrat der Lokalzeichen und des Auflösungsvermögens darstellt, und in einem immer gröber werdenden Raster in den nachfolgenden Arealen, die damit ihre speziellen Aufgaben von einer höheren Warte aus „global“ erfüllen können. Ein weitverzweigtes, nicht mehr retinotopisch geordnetes System rückläufiger Projektionen könnte nach Zeki die Integration der Informationen in die topografisch präzise organisierte Area V1 ermöglichen. Neuere Arbeiten bei Patienten zeigen, dass wahrscheinlich auch direkte Projektionen in höhere visuelle Areale (z. B. für Bewegungsverarbeitung) unter Umgehung von V1 existieren [73].
Парциальное перекрещивание зрительного нерва в хиазме и последующее разделение на правую половину зрительной коры для левой половины поля зрения и левую половину зрительной коры для правого поля зрения делает необходимым еще одну нейронную систему, которая связывала бы сенсорные впечатления от двух половин поля зрения. Эта межполушарная кортико-кортикальная связь осуществляется через corpus callosum. В своей задней части оно может передавать зрительные сигналы, а в передних частях — другие соматосенсорные функции, такие как осязание, с помощью быстропроводящих миелинизированных волокон между полушариями. Точная топография и малые RF позволяют осуществлять такое сопряжение в V1, естественно, только в узкой полосе вдоль вертикальных разделительных линий половин поля зрения. В V1 это соответствует клеткам, расположенным на границе с V2. Там удалось обнаружить клетки, RF которых разделены вертикальным меридианом поля зрения на 2 половины, при этом контрлатеральная половина поля зрения снабжалась напрямую через односторонний зрительный путь, а ипсилатеральная половина поля зрения — через посредничество corpus callosum. В последующих областях V1, где ретинотопическая точность снижается в пользу генерализованного анализа изображений, перекрытие постепенно увеличивается и в V5 может достигать 20°. Таким образом, понятно, почему Mehdorn [120], а также Dengler и Kommerell [39] при предъявлении стереоизображений, симметрично распределенных относительно вертикального меридиана поля зрения, смогли обнаружить у человека восприятие глубины при диспаратности более 20° (!).
Die partielle Kreuzung des Sehnervs im Chiasma und die daraus folgende Teilung in eine rechte Hälfte des visuellen Kortex für die linke Gesichtshälfte und eine linke Hälfte des visuellen Kortex für das rechte Gesichtsfeld macht ein weiteres neuronales System erforderlich, das die Sinneseindrücke der beiden Gesichtsfeldhälften miteinander verbindet. Diese interhemisphärische, kortikokortikale Verbindung erfolgt über das Corpus callosum. Dieses kann in seinem hinteren Anteil visuelle Signale, in den vorderen Teilen andere somatosensorische Funktionen – wie den Tastsinn – mit schnell leitenden markhaltigen Fasern zwischen den Hirnhälften übertrage. Die präzise Topografie und die kleinen RF ermöglichen eine solche Koppelung in V1 natürlich nur in einem schmalen Streifen entlang der vertikalen Trennlinien der Gesichtsfeldhälften. Dies entspricht in V1 den Zellen, die an der Grenze zu V2 liegen. Man konnte dort Zellen nachweisen, deren RF vom vertikalen Meridian des Gesichtsfelds in 2 Hälften geteilt sind, wobei die im Gesichtsfeld kontralaterale Hälfte direkt über die gleichseitige Sehbahn, die im Gesichtsfeld ipsilaterale Hälfte über Vermittlung des Corpus callosum versorgt wurde. In den auf V1 folgenden Arealen, deren retinotope Präzision zugunsten einer generalisierten Bildanalyse geringer wird, nimmt die Überlappung schrittweise zu und kann in V5 bis zu 20° betragen. So ist es auch verständlich, dass Mehdorn [120] sowie Dengler und Kommerell [39] bei Darbietung der symmetrisch um den vertikalen Gesichtsfeldmeridian verteilten Stereobilder Tiefenwahrnehmung bis zu Disparitäten von über 20° (!) beim Menschen nachweisen konnten.
Функциональное строение зрительной коры
Funktioneller Aufbau der Sehrinde
Area striata в развернутом состоянии представляет собой пласт толщиной около 2 мм. Благодаря своему анатомически заметному параллельному поверхности расслоению на 6 клеточных слоев она является наиболее детально изученной частью зрительной коры. Рецептивные поля ее нейронов — за исключением входных нейронов в слое IV и клеток, отвечающих за кодирование цвета, — больше не имеют круговой организации «центр-периферия», а вместо этого имеют различную прямоугольную форму с разными критериями торможения и возбуждения.
Die Area striata stellt in aufgefaltetem Zustand eine etwa 2 mm dicke Platte dar. Sie ist mit ihrer anatomisch auffallenden oberflächenparallelen Schichtung in 6 Zelllagen der am genauesten untersuchte Teil der Sehrinde. Die rezeptiven Felder ihrer Neurone haben – bis auf die Eingangsneurone in Schicht IV und die Zellen zur Farbkodierung – keine runde Zentrum-Umfeld-Organisation mehr und sind stattdessen von verschiedener rechteckiger Form mit unterschiedlichen Kriterien für Hemmung und Erregung.
Простые клетки (Simple Cells) реагируют на неподвижные и движущиеся контуры на сетчатке. Комплексные клетки (Complex Cells) возбуждаются почти исключительно движущимися контурами или интермиттирующим воздействием стимула; прежде всего, в отличие от простых клеток, степень возбуждения внутри рецептивного поля не зависит от места приложения стимула. Большинство этих двух типов клеток обладают ориентационной специфичностью, то есть они возбудимы только в том случае, если стимул в виде контура падает на сетчатку под определенным углом. Часть клеток при этом реагирует только на определенное направление движения (специфичность к движению). Среди обоих типов клеток встречаются нейроны, которые оптимально реагируют только при определенной длине контура (так называемое конечное торможение, поскольку длина стимула, превышающая оптимальную, приводит к торможению клетки). Наконец, существуют цветоспецифические клетки с круглыми RF, которые, в отличие от «цветослепых» простых и комплексных клеток, организованы симметрично и, следовательно, не обладают ориентационной специфичностью.
Einfache Zellen (Simple Cells) reagieren auf ruhende und auf bewegte Konturen auf der Netzhaut. Komplexe Zellen (Complex Cells) werden fast ausschließlich durch bewegte Konturen oder intermittierende Reizdarbietung erregt; vor allem ist der Grad der Erregung im Unterschied zu den einfachen Zellen innerhalb des rezeptiven Feldes unabhängig vom Reizort. Die meisten dieser beiden Zelltypen sind orientierungsspezifisch, d. h. sie sind nur erregbar, wenn der Konturenreiz in einem bestimmten Winkel auf die Netzhaut trifft. Ein Teil der Zellen reagiert dabei nur auf eine bestimmte Bewegungsrichtung (Bewegungsspezifität). Unter beiden Zelltypen finden sich Neurone, die nur bei bestimmten Konturenlängen optimal reagieren (sog. Endinhibition, weil eine größere als die optimale Reizlänge zur Hemmung der Zelle führt). Schließlich existieren noch farbspezifische Zellen mit runden RF, die im Unterschied zu den „farbenblinden“ einfachen und komplexen Zellen symmetrisch organisiert und damit nicht orientierungsspezifisch sind.
Кроме того, степень возбудимости корковых нейронов, по-видимому, дополнительно модулируется V2 направлением взгляда, что может быть интерпретировано как специфическое для направления взгляда кодирование эгоцентрической локализации направления [190].
Zusätzlich wird das Ausmaß der Erregbarkeit kortikaler Neurone nach V2 offenbar noch durch die Blickrichtung moduliert, was als blickrichtungsspezifische Kodierung der egozentrischen Richtungslokalisation gedeutet werden kann [190].
Электрофизиологические исследования, проведенные преимущественно в Area striata, показали, что нейронное сопряжение происходит в первую очередь перпендикулярно поверхности. По аналогии с первичной соматосенсорной корой, для которой Mountcastle (1957) обнаружил аналогичную вертикальную организацию у кошки, Hubel и Wiesel [89] заимствовали термин «колонна» (столбец). Клетки, расположенные в линию перпендикулярно поверхности, демонстрируют одинаковые оптимальные условия стимуляции, такие как окулярность, цвет и ориентация. Их рецептивные поля относятся к одной и той же области сетчатки. При срезе перпендикулярно поверхности первичной зрительной коры эта функциональная архитектура после соответствующего окрашивания выглядит как состоящая из колонн, при этом отдельные колонны кодируют различные функции [98], [110], [137].
Elektrophysiologische Untersuchungen haben vor allem an der Area striata gezeigt, dass die neuronale Koppelung in erster Linie senkrecht zur Oberfläche erfolgt. In Analogie zum primären somatosensorischen Kortex, für den Mountcastle (1957) bei der Katze eine gleichartige vertikale Organisation fand, wurde von Hubel und Wiesel [89] der Begriff der Kolumne (Säule) übernommen. In einer Linie senkrecht zur Oberfläche angeordnete Zellen zeigen gleichartige optimale Reizbedingungen wie Äugigkeit, Farbe und Orientierung. Ihre rezeptiven Felder entstammen dem gleichen Netzhautareal. Bei einem Schnitt senkrecht zur Oberfläche des primären visuellen Kortex stellt sich diese funktionelle Architektur nach entsprechender Färbung wie aus Säulen zusammengesetzt dar, wobei die einzelnen Säulen verschiedene Funktionen kodieren [98], [110], [137].