a Vieth-Müller-Horopterkreis von oben gesehen. Er verbindet den Fixierpunkt FP mit den beiden Knotenpunkten K und K‘ (ursprünglich die Mittelpunkte) des rechten und des linken Auges. Sein Radius r lässt sich nach Pythagoras berechnen: $ r = h^{2} + d^{2} $: 2 h, wobei d den halben Knotenpunktabstand und h die Distanz zwischen FP und KK‘ bedeuten. Die Richtungslinien eines jeden Kreispunkts (z. B. $ P_{x} $) treffen auf Netzhautstellen mit identischen Abständen zu den Foveolae F und F‘, denn nur wenn $ \beta_{1} = \beta_{2} $, kann $ \gamma_{1} = \gamma_{2} $ sein. Bei diesem Konzept wird vorausgesetzt, dass objektiver retinaler Lagewert und subjektiver Funktionswert sich spiegelsymmetrisch entsprechen, P und P‘ also korrespondierende Netzhautorte darstellen. Außerhalb des Kreises liegende Punkte projizieren sich nach diesem Konzept auf disparate Netzhautpunkte und werden doppelt gesehen. Punkt $ E_{x} $ wird z. B. beidseits auf nasalen Netzhautstellen abgebildet und deshalb von beiden Augen jeweils temporal lokalisiert und in der Fixationsebene bei $ E_{r} $ vom rechten Auge und bei $ E_{1} $ vom linken Auge wahrgenommen (homonyme physiologische Diplopie).
b Geometrischer Längshoropter. Er stellt einen Zylindermantel mit dem Vieth-Müller-Kreis (VMK) als Umfang und dem Prévost-Lot (PL) als senkrecht durch den Fixierpunkt (FP) verlaufende Gerade dar ([179]).
Empirischer Horopter
Der bisher dargestellte mathematisch-geometrische Horopter besitzt aufgrund seiner vereinfachenden Schematisierung vor allem theoretischen und didaktischen Wert. Untersucht man jedoch die Lage der korrespondent auf der Netzhaut abgebildeten Punkte im Gesichtsraum durch ein psychophysisches Experiment (beidäugiges Sehen bei disparater Abbildung, Nadelexperiment, Kap. 1.4.4), so zeigt der dabei ermittelte empirische Horopter [68], [69], [70] neben individuellen Varianten 2 prinzipielle Abweichungen vom mathematisch-geometrischen Horopter.
Die 1. Abweichung führt zu einer Abflachung der Horopterkrümmung mit der Fixationsdistanz. In ca. 30 cm besitzt der empirische Längshoropter in der Blickebene etwa Kreisbogenform mit dem Zentrum zwischen den Knotenpunkten der Augen. Mit größeren Abständen flachen die Horopterlinien mehr und mehr ab und nähern sich zunehmend einer frontoparallelen Ebene, in noch größerer Fixationsdistanz nimmt der Horopter eine gegen den Beobachter konvexe Krümmung ein [135], [179]. Die Ursache dieser nach Hering [71] und Hillebrand [79] benannten Horopterabweichung kann auf die Inkongruenz der Netzhäute, wie sie sich im Kundt-Streckenteilungsversuch zeigt, zurückgeführt werden [79], [129], [185]. Für denselben seitlichen Richtungswert haben korrespondierende Netzhautorte retinonasal eine größere Distanz zur Fovea als retinotemporal (▶Abb. 1.68).
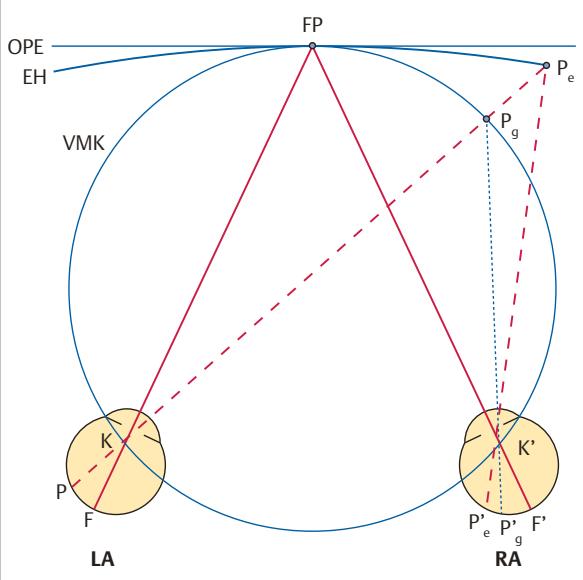
Abb. 1.68 Horopter im horizontalen Gesichtsfeldmeridian bei symmetrischer Konvergenz und horizontaler Blickebene. Die Richtungslinien des vom empirischen Horopter ausgehenden Punktes $ P_{e} $ und die Richtungslinien von $ P_{g} $ auf dem geometrischen Horopter (Vieth-Müller-Kreis) sind gestrichelt eingezeichnet. Die durchgezogenen Richtungslinien stellen die Gesichtslinien dar. Die geringe Krümmung des empirischen Längshoropters entsteht durch die physiologische nasotemporale Asymmetrie der retinalen Richtungswerte in Bezug auf ihre Distanz zur Foveola: eine temporale Netzhautstelle hat eine geringere Distanz zur Foveola als die mit ihr korrespondierende Stelle der nasalen Netzhaut am anderen Auge ($ P'_{e}F' > PF $; aber $ P'_{g}F' = PF $). Objekte, die auf dem empirischen Horopter liegen, werden vom Beobachter in einer frontoparallelen Ebene (der „Kernfläche“ Herings) empfunden, da sie sich ohne Quer-disparation auf der Netzhaut abbilden. Die Krümmung des EH gegen die objektive frontoparallele Ebene (OFPE) in Bezug auf Ausmaß und Richtung wird durch die Fixationsdistanz bestimmt.
Die 2. Abweichung des empirischen vom geometrischen Horopter wird durch den Schiefstand der die Empfindung vertikal vermittelnden Längsmittelschnitte der Netzhäute verursacht, der beide Augen weitgehend spiegelsymmetrisch um 1–2° betrifft, wobei die Quermittelschnitte nicht oder nur minimal betroffen sind [67], [154]. Folge der ungleichmäßigen, aber systematischen Verteilung der meridionalen Raumwerte ist für den Horopter bei symmetrischer Konvergenz eine Kippung des Prevost-Lots mit seinem oberen Ende vom Beobachter weg und dem unteren Ende zu ihm hin. Der Längshoropter wird dadurch bei symmetrischer Konvergenz zu einer kegelmantelähnlichen Fläche mit nach unten gerichteter Kegelspitze und entsprechender Kippung [179]. Bei geradeaus in weite Ferne gerichtetem Blick und aufrechter Körperhaltung treffen sich die Längsmittelschnittebenen aufgrund ihres V-förmigen Schiefstands etwa in der Fuß-bodenebene [67]. In dieser beim Gehen häufig eingenommenen Blickrichtung liegt der Horopter also in der Ebene, auf der wir laufen, so dass stereoptische Informationen über den Boden vor uns optimal genutzt werden können.
Ein Schiefstand der Längsmittelschnitte tritt aber auch durch die individuell unterschiedlich starke Näherungsdisklination auf, eine echte mit Konvergenz und Akkommodation gekuppelte Exzyklovergenz. Das Prevost-Lot erfährt dadurch eine noch stärkere Kippung und kann dann z. B. in der Ebene eines auf dem Tisch liegenden Buches verlaufen [179], [185]. Gleichzeitig kommt es zu vertikalen Disparitäten im seitlichen Gesichtsfeld auch neben dem Fixierpunkt, da die Quermittelschnitte bei dieser anatomischen Bulbusrollung ebenfalls schräg stehen.
Nachdem der empirische Horopter für einen Beobachter ermittelt wurde, also für eine bestimmte Fixationsdistanz die Orte korrespondent abgebildeter Objekte im Außenraum feststehen, vermitteln alle auf dem Horopter liegenden Objektpunkte 2 Qualitäten des Raumsinns für den Beobachter:
Jeder einzelne Objektpunkt wird vom rechten und linken Auge in derselben Richtung relativ zur Hauptsehrichtung empfunden. Das ist natürlich selbstverständlich, da es das Horopterkriterium darstellt.
Die Gesamtheit der Punkte, die sich korrespondent oder nur mit Längsdisparation abbilden, erscheint für den Beobachter in derselben Entfernung wie der binokulare Fixierpunkt, also in einer Ebene, die Hering Kernfläche genannt hat, um den objektiven Raum vom subjektiven Sehraum auch sprachlich zu unterscheiden [71], [72], [179]. Dabei bezieht sich der Begriff Kernfläche in der Regel auf die subjektive frontoparallele Ebene bei symmetrischer Konvergenz für Objekte auf dem Längshoropter, weil die Wahrnehmung der Frontoparallelität nur durch die fehlende Querdisparation vermittelt wird.
1.4.4 Beidäugiges Sehen bei disparater Abbildung
Objekte außerhalb des Horopters bilden sich auf disparaten, nicht miteinander korrespondierenden Netzhautorten ab, werden also von jedem Auge in anderer Richtung lokalisiert und müssten deshalb streng genommen bei simultaner beidäugiger Betrachtung stets doppelt wahrgenommen werden. Bei querdisparater Abbildung wird diese Form der Diplopie physiologisch genannt, da sie sich aus der physiologischen Optik zwangsläufig ergibt. Unser Sehsystem verfügt aber über eine gewisse Toleranz für geringe Quer- und Längsdisparationen, so dass in einem engen Bereich außerhalb des Horopters, trotz nicht exakt korrespondenter Abbildung, einfach gesehen werden kann.
In einem einfachen Nadelexperiment kann man sich diese Verhältnisse für die Querdisparation selbst vor Augen führen, indem man 2 übereinander gehaltene Nadeln mit aufgestützten Unterarmen vor einem weißen Blatt Papier in der Medianebene gegeneinander vor und zurück bewegt. Die nach oben gehaltene Spitze der Nadel in der linken Hand wird ca. 10 cm vor dem homogenen Hintergrund fixiert, die nach unten gerichtete Nadelspitze in der rechten Hand hält man dicht vor das Papier. Diese Nadel erscheint jetzt in homonymer oder ungekreuzter Diplopie (das rechte Doppelbild wird vom rechten, das linke vom linken Auge wahrgenommen). Nähert man nun unter konzentrierter Fixation der unteren Nadelspitze die obere Nadel der Fixationsebene, also dem Längshoropter, nimmt man eine horizontale Annäherung der Doppelbilder wahr. Der Tiefenunterschied zwischen Fixierebene und der Ebene der Doppelbilder, zu Beginn nur angedeutet erkennbar, wird immer merklicher und gleichzeitig im Ausmaß geringer, bis bei ca. 2 mm Tiefenabstand kein Doppelbild mehr wahrgenommen wird, obwohl die Horopterebene noch nicht erreicht ist und die obere Nadel querdisparate (nach Tschermak „nasal disparate“) Netz-hautorte stimuliert.
Man kann nun die Nadeln so halten, dass beide in der Medianebene zu liegen scheinen, die obere eindeutig ein wenig hinter der unteren. Unter Beibehaltung der Fixation der unteren Nadelspitze erkennt man aber bei abwechselndem Zukneifen eines Auges immer noch eine parallaktische Verschiebung der Nadeln gegeneinander in derselben Weise wie zu Beginn des Versuchs, als noch physiologische Diplopie bestand. Bei weiterer Annäherung der oberen Nadel gelangt diese in die Horopterebene, und beide Nadelspitzen werden in derselben Distanz vom Betrachter in einer frontoparallelen Ebene empfun-den. Noch weitere Annäherung der oberen Nadel führt zunächst zu gekreuzter oder temporaler Disparität mit dem eindeutigen Eindruck „davor“ und dann zur gekreuzten oder heteronymen Diplopie, wobei die Eindeutigkeit der Tiefendistanz abnimmt.