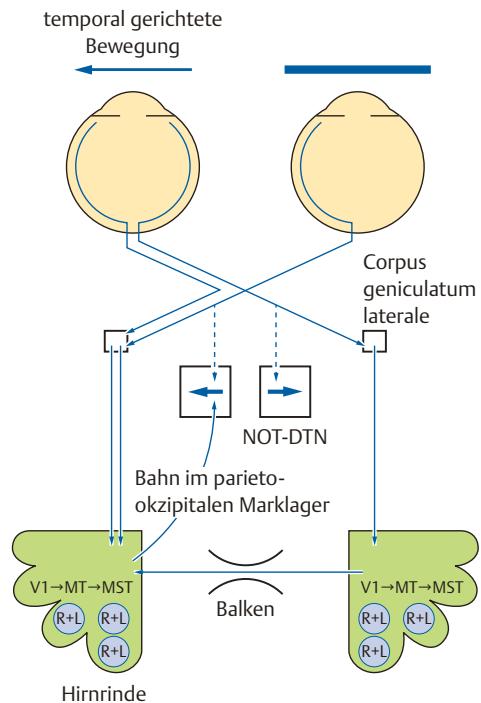
b Area V1 mit Binokularzellen
Abb. 1.42 Bahnen der horizontalen Augenfolgebewegung und der Optokinetik NOT-DTN sind Kerne, die lateral vor den Vierhügeln im Mittelhirn liegen. Der rechte NOT-DTN kann nur rechts gerichtete Folgebewegungen auslösen, der linke nur links gerichtete.
Weisungen erhalten die beiden NOT-DTN über 2 Wege, einen subkortikalen und einen kortikalen. Bei Tieren mit geringem Binokularsehen (Kaninchen) ist der subkortikale Pfad vom gegenseitigen Auge der einzige Weg (gestrichelte Pfeile). Zum Beispiel steuert das linke Auge nur den rechten NOT-DTN an. Daher lassen sich beim Kaninchen vom linken Auge nur nach rechts (nasal) gerichtete Folgebewegungen auslösen. Die vom Kaninchen „geerbte“ subkortikale Bahn ist auch beim Menschen als akzessorischer optischer Trakt nachweisbar [21], spielt aber wahrscheinlich nur in den ersten 3 Lebensmonaten eine Rolle. Danach reifen Schaltungen über die Hirnrinde aus, die es ermöglichen, dass von einem Auge beide NOT-DTN angesteuert werden [37], [28].
a Diese Abbildung zeigt die Verbindung über die rechte und linke Hirnrinde zum gegenseitigen NOT-DTN, welche die nasal gerichtete Folgebewegung vermittelt. (V1 ist die primäre visuelle Area, von dort werden die für Bewegung zuständigen Areae MT und MST angesteuert.)
b Diese Abbildung zeigt die Verbindung zum gleichseitigen NOT-DTN, welche die temporal gerichtete Folgebewegung vermittelt. Normalerweise funktioniert die nach temporal gerichtete Folgebewegung ebenso gut wie die nach nasal gerichtete. Beim frühkindlichen Schielen ist die nach temporal gerichtete Folgebewegung gestört (▶Abb. 4.55). Beim Primaten projiziert MT-MST nicht nur in den ipsilateralen NOT-DTN, sondern auch in den ipsilateralen dorsolateralen pontinen Nukleus (DLPN) [16], [18], [29]. Diese Projektion ist für die foveal ausgelösten Folgebewegungen wichtiger als die zum NOT-DTN.
Vestibuläre Kompensationsbewegung
Der von den Bogengängen des Innenohrs gesteuerte vestibulookuläre Reflex (VOR) stabilisiert unsere Augen im Raum, wenn wir den Kopf hin und her drehen. Dadurch verhindert der VOR, zusammen mit der Optokinetik, ein Verwischen des Netzhautbilds. Das vestibuläre System ist für den Ausgleich kurzfristiger, starker Drehbeschleunigungen des Kopfes spezialisiert, das optokinetische System für den Ausgleich langanhaltender, langsamer Kopfbewegungen. Vestibuläres und optokinetisches System ergänzen sich daher in idealer Weise. So verhindert der VOR z. B. ein Wackeln des Netzhautbilds beim Kopfnicken. Die Optokinetik allein wäre dafür zu träge. Der Einfluss propriozeptiver Meldungen vom Hals ist bei der Kopfdrehung normalerweise gering [1]. Nur bei Ausfall beider Gleichgewichtsorgane gewinnt die Propriozeption vom Hals an Bedeutung.
Mit einem Selbstversuch kann man sich vor Augen führen, dass der VOR hohe Drehbeschleunigungen des Kopfes sehr gut ausgleicht. Ein Lesetext bleibt erkennbar, wenn man den Kopf rasch hin und her dreht. Das Augenfolgesystem versagt dagegen, wenn man den Text bei ruhigem Kopf mit der gleichen Winkelgeschwindigkeit hin und her bewegt. Der Lesetext erscheint dann völlig verwischt.
Reizaufnehmendes Organ für den VOR sind die in 3 Raumebenen angeordneten Bogengänge (▶Abb. 1.43). Bei Geschwindigkeitsänderung bleibt die Flüssigkeit in den Bogengängen im Verhältnis zum Schädel zurück. Dies führt zu einer Scherströmung, welche die Sinneshärchen (Stereozilien) der Haarzellen abbiegt, die in die Kupula- Membran hineinragen. Je nach Richtung der Biegung werden die zum Hirnstamm laufenden Nervenfasern erregt oder gehemmt. Bei unbewegtem Kopf halten sich die Aktivitäten aller 6 Bogengänge die Waage. Bei einsetzender Rechtsdrehung wird der rechte horizontale Bogengang aktiviert und der linke gehemmt. Diese reziproken Aktivitätsänderungen bewirken eine Kompensationsbewegung der Augen nach links. In den beiden anderen Raumebenen wird der VOR durch reziproke Aktivitätsänderungen der vertikalen Bogengänge ausgelöst.
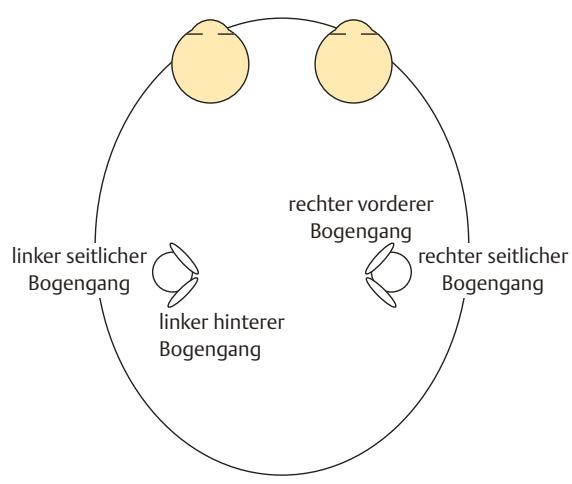
Abb. 1.43 Bogengänge im rechten und linken Felsenbein. Die Bogengänge der beiden Seiten arbeiten zusammen. Gereizt wird jeweils der Bogengang, zu dem der Kopf hingedreht wird. Gehemmt wird jeweils der Bogengang, von dem der Kopf weggedreht wird. So wird z. B. bei einer Kopfdrehung nach rechts der rechte seitliche Bogengang aktiviert, der linke seitliche gehemmt. Bei einer Kopfdrehung schräg nach rechts vorne unten wird der rechte vordere Bogengang aktiviert und der linke hintere gehemmt. Bei den meisten im täglichen Leben vorkommenden Kopfdrehungen werden mindestens 2 Bogengänge gleichzeitig aktiviert und 2 gehemmt. So werden z. B. bei einer Kopfdrehung nach gerade vorne unten (beim Nicken) die vorderen Bogengänge beider Seiten aktiviert und die hinteren beider Seiten gehemmt. Bei der Kopfneigung zur rechten Schulter wird der vordere und hintere Bogengang der rechten Seite aktiviert, der vordere und hintere Bogengang der linken Seite wird gehemmt.
Merke

Beim vestibulookulären Reflex (VOR) „fließen“ die Augen während der langsamen Nystagmusphasen in der gleichen Richtung wie die Endolymphe in den Bogengängen.
Die Reaktionszeit des VOR ist sehr kurz. Dies hängt damit zusammen, dass nur 3 hintereinander geschaltete Neurone benötigt werden, um die Reizung der Bogengänge auf die Augenmuskeln zu übertragen. Die Zellen des 1. Neurons liegen bei den Bogengängen im Ganglion vestibuli. Diese Zellen nehmen das Signal von der Kupula-Membran auf, verwandeln es in Aktionspotenziale und senden es zum Nucleus vestibularis in der Brücke. Dort befinden sich die Zellen des 2. Neurons, die das Signal zu den Augenmuskelkernen (III, IV und VI) senden. Die in den Augenmuskelkernen liegenden Zellen des 3. Neurons leiten die Erregung über die entsprechenden Hirnnerven zu den Augenmuskeln.
Eine Ausnahme von diesem Drei-Neuronen-Reflex macht nur der M. rectus medialis. Für ihn ist ein internukleäres Neuron zwischengeschaltet, so dass die Reflexbahn aus 4 Neuronen besteht. Die internukleären Neurone entspringen im Abduzenskern und ziehen nach Kreuzung im medialen longitudinalen Faszikulus zum Nucleus oculomotorius (▶Abb. 1.44).