b Область V1 с бинокулярными клетками
b Area V1 mit Binokularzellen
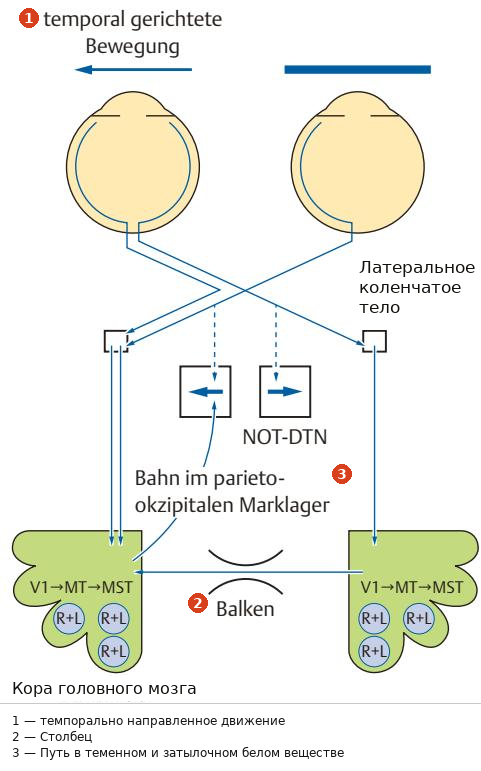
Рис. 1.42 Пути горизонтальных плавных следящих движений глаз и оптокинетики. NOT-DTN — это ядра, расположенные латерально перед четверохолмием в среднем мозге. Правый NOT-DTN может запускать только следящие движения вправо, левый — только влево.
Abb. 1.42 Bahnen der horizontalen Augenfolgebewegung und der Optokinetik NOT-DTN sind Kerne, die lateral vor den Vierhügeln im Mittelhirn liegen. Der rechte NOT-DTN kann nur rechts gerichtete Folgebewegungen auslösen, der linke nur links gerichtete.
Команды поступают в оба NOT-DTN двумя путями: субкортикальным и кортикальным. У животных со слабым бинокулярным зрением (кролик) субкортикальный путь от противоположного глаза является единственным (пунктирные стрелки). Например, левый глаз управляет только правым NOT-DTN. Поэтому у кролика при стимуляции левого глаза можно вызвать только следящие движения вправо (назально). Субкортикальный путь, «унаследованный» от кролика, также обнаруживается у человека в виде добавочного зрительного тракта [21], но, вероятно, играет роль только в первые 3 месяца жизни. В дальнейшем созревают связи через кору головного мозга, которые позволяют управлять обоими NOT-DTN от одного глаза [37], [28].
Weisungen erhalten die beiden NOT-DTN über 2 Wege, einen subkortikalen und einen kortikalen. Bei Tieren mit geringem Binokularsehen (Kaninchen) ist der subkortikale Pfad vom gegenseitigen Auge der einzige Weg (gestrichelte Pfeile). Zum Beispiel steuert das linke Auge nur den rechten NOT-DTN an. Daher lassen sich beim Kaninchen vom linken Auge nur nach rechts (nasal) gerichtete Folgebewegungen auslösen. Die vom Kaninchen „geerbte“ subkortikale Bahn ist auch beim Menschen als akzessorischer optischer Trakt nachweisbar [21], spielt aber wahrscheinlich nur in den ersten 3 Lebensmonaten eine Rolle. Danach reifen Schaltungen über die Hirnrinde aus, die es ermöglichen, dass von einem Auge beide NOT-DTN angesteuert werden [37], [28].
a На этом рисунке показана связь через правую и левую кору головного мозга с противоположным NOT-DTN, которая опосредует следящее движение, направленное назально. (V1 — первичная зрительная область, оттуда осуществляется управление областями MT и MST, отвечающими за движение.)
a Diese Abbildung zeigt die Verbindung über die rechte und linke Hirnrinde zum gegenseitigen NOT-DTN, welche die nasal gerichtete Folgebewegung vermittelt. (V1 ist die primäre visuelle Area, von dort werden die für Bewegung zuständigen Areae MT und MST angesteuert.)
b На этом рисунке показана связь с односторонним NOT-DTN, которая опосредует следящее движение, направленное темпорально. Обычно следящее движение, направленное темпорально, работает так же хорошо, как и направленное назально. При косоглазии в раннем детстве следящее движение, направленное темпорально, нарушено (▶Рис. 4.55). У приматов MT-MST проецируется не только в ипсилатеральный NOT-DTN, но и в ипсилатеральное дорсолатеральное pontine ядро (DLPN) [16], [18], [29]. Эта проекция более важна для следящих движений, вызванных фовеально, чем проекция в NOT-DTN.
b Diese Abbildung zeigt die Verbindung zum gleichseitigen NOT-DTN, welche die temporal gerichtete Folgebewegung vermittelt. Normalerweise funktioniert die nach temporal gerichtete Folgebewegung ebenso gut wie die nach nasal gerichtete. Beim frühkindlichen Schielen ist die nach temporal gerichtete Folgebewegung gestört (▶Abb. 4.55). Beim Primaten projiziert MT-MST nicht nur in den ipsilateralen NOT-DTN, sondern auch in den ipsilateralen dorsolateralen pontinen Nukleus (DLPN) [16], [18], [29]. Diese Projektion ist für die foveal ausgelösten Folgebewegungen wichtiger als die zum NOT-DTN.
Вестибулоокулярная компенсаторная реакция
Vestibuläre Kompensationsbewegung
Вестибулоокулярный рефлекс (VOR), управляемый полукружными каналами внутреннего уха, стабилизирует наши глаза в пространстве при поворотах головы из стороны в сторону. Таким образом VOR совместно с оптокинетикой предотвращает размытие изображения на сетчатке. Вестибулярная система специализируется на компенсации кратковременных сильных угловых ускорений головы, а оптокинетическая система — на компенсации длительных медленных движений головы. Поэтому вестибулярная и оптокинетическая системы идеально дополняют друг друга. Так, например, VOR предотвращает дрожание изображения на сетчатке при кивках головой. Одной оптокинетики для этого было бы недостаточно из-за ее инертности. Влияние проприоцептивных сигналов от шеи при повороте головы обычно незначительно [1]. Только при выпадении обоих органов равновесия проприоцепция от шеи приобретает значение.
Der von den Bogengängen des Innenohrs gesteuerte vestibulookuläre Reflex (VOR) stabilisiert unsere Augen im Raum, wenn wir den Kopf hin und her drehen. Dadurch verhindert der VOR, zusammen mit der Optokinetik, ein Verwischen des Netzhautbilds. Das vestibuläre System ist für den Ausgleich kurzfristiger, starker Drehbeschleunigungen des Kopfes spezialisiert, das optokinetische System für den Ausgleich langanhaltender, langsamer Kopfbewegungen. Vestibuläres und optokinetisches System ergänzen sich daher in idealer Weise. So verhindert der VOR z. B. ein Wackeln des Netzhautbilds beim Kopfnicken. Die Optokinetik allein wäre dafür zu träge. Der Einfluss propriozeptiver Meldungen vom Hals ist bei der Kopfdrehung normalerweise gering [1]. Nur bei Ausfall beider Gleichgewichtsorgane gewinnt die Propriozeption vom Hals an Bedeutung.
С помощью простого опыта можно убедиться в том, что VOR очень эффективно компенсирует высокие угловые ускорения головы. Текст остается читаемым, если быстро поворачивать голову из стороны в сторону. Напротив, система слежения за объектом отказывает, если при неподвижной голове перемещать текст из стороны в сторону с той же угловой скоростью. В этом случае текст кажется полностью размытым.
Mit einem Selbstversuch kann man sich vor Augen führen, dass der VOR hohe Drehbeschleunigungen des Kopfes sehr gut ausgleicht. Ein Lesetext bleibt erkennbar, wenn man den Kopf rasch hin und her dreht. Das Augenfolgesystem versagt dagegen, wenn man den Text bei ruhigem Kopf mit der gleichen Winkelgeschwindigkeit hin und her bewegt. Der Lesetext erscheint dann völlig verwischt.
Рецепторным органом для VOR являются полукружные каналы, расположенные в трех плоскостях пространства (▶Рис. 1.43). При изменении скорости жидкость в полукружных каналах отстает относительно черепа. Это приводит к возникновению сдвигового потока, который отклоняет сенсорные волоски (стереоцилии) волосковых клеток, выступающие в мембрану купулы. В зависимости от направления отклонения нервные волокна, идущие к стволу мозга, возбуждаются или тормозятся. При неподвижной голове активность всех 6 полукружных каналов сбалансирована. При начале поворота головы вправо активируется правый горизонтальный полукружный канал, а левый тормозится. Эти реципрокные изменения активности вызывают компенсаторное движение глаз влево. В двух других плоскостях пространства VOR запускается за счет реципрокных изменений активности вертикальных полукружных каналов.
Reizaufnehmendes Organ für den VOR sind die in 3 Raumebenen angeordneten Bogengänge (▶Abb. 1.43). Bei Geschwindigkeitsänderung bleibt die Flüssigkeit in den Bogengängen im Verhältnis zum Schädel zurück. Dies führt zu einer Scherströmung, welche die Sinneshärchen (Stereozilien) der Haarzellen abbiegt, die in die Kupula- Membran hineinragen. Je nach Richtung der Biegung werden die zum Hirnstamm laufenden Nervenfasern erregt oder gehemmt. Bei unbewegtem Kopf halten sich die Aktivitäten aller 6 Bogengänge die Waage. Bei einsetzender Rechtsdrehung wird der rechte horizontale Bogengang aktiviert und der linke gehemmt. Diese reziproken Aktivitätsänderungen bewirken eine Kompensationsbewegung der Augen nach links. In den beiden anderen Raumebenen wird der VOR durch reziproke Aktivitätsänderungen der vertikalen Bogengänge ausgelöst.
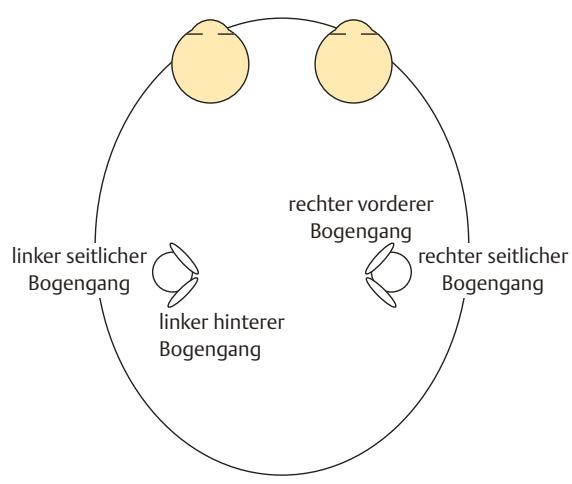
Рис. 1.43 Полукружные каналы в правом и левом височных костях. Полукружные каналы обеих сторон работают совместно. Возбуждается тот полукружный канал, в сторону которого поворачивается голова. Тормозится тот полукружный канал, от которого голова отворачивается. Так, например, при повороте головы вправо активируется правый латеральный полукружный канал, а левый латеральный тормозится. При повороте головы по диагонали вправо-вперед-вниз активируется правый передний полукружный канал, а левый задний тормозится. При большинстве поворотов головы, встречающихся в повседневной жизни, одновременно активируются как минимум 2 полукружных канала и тормозятся 2. Так, например, при повороте головы строго вперед-вниз (при кивке) активируются передние полукружные каналы обеих сторон, а задние обеих сторон тормозятся. При наклоне головы к правому плечу активируются передний и задний полукружные каналы правой стороны, а передний и задний полукружные каналы левой стороны тормозятся.
Abb. 1.43 Bogengänge im rechten und linken Felsenbein. Die Bogengänge der beiden Seiten arbeiten zusammen. Gereizt wird jeweils der Bogengang, zu dem der Kopf hingedreht wird. Gehemmt wird jeweils der Bogengang, von dem der Kopf weggedreht wird. So wird z. B. bei einer Kopfdrehung nach rechts der rechte seitliche Bogengang aktiviert, der linke seitliche gehemmt. Bei einer Kopfdrehung schräg nach rechts vorne unten wird der rechte vordere Bogengang aktiviert und der linke hintere gehemmt. Bei den meisten im täglichen Leben vorkommenden Kopfdrehungen werden mindestens 2 Bogengänge gleichzeitig aktiviert und 2 gehemmt. So werden z. B. bei einer Kopfdrehung nach gerade vorne unten (beim Nicken) die vorderen Bogengänge beider Seiten aktiviert und die hinteren beider Seiten gehemmt. Bei der Kopfneigung zur rechten Schulter wird der vordere und hintere Bogengang der rechten Seite aktiviert, der vordere und hintere Bogengang der linken Seite wird gehemmt.
Запомните
Merke

При вестибулоокулярном рефлексе (VOR) во время медленных фаз нистагма глаза «плывут» в том же направлении, что и эндолимфа в полукружных каналах.
Beim vestibulookulären Reflex (VOR) „fließen“ die Augen während der langsamen Nystagmusphasen in der gleichen Richtung wie die Endolymphe in den Bogengängen.
Время реакции VOR очень короткое. Это связано с тем, что для передачи раздражения от полукружных каналов к глазным мышцам требуется всего 3 последовательно соединенных нейрона. Тела нейронов 1-го порядка расположены при полукружных каналах в ганглии вестибулярного нерва (ganglion vestibuli). Эти клетки воспринимают сигнал от мембраны купулы, преобразуют его в потенциалы действия и передают в вестибулярное ядро (nucleus vestibularis) в мосту. Там находятся тела нейронов 2-го порядка, которые передают сигнал к ядрам глазодвигательных нервов (III, IV и VI). Тела нейронов 3-го порядка, расположенные в ядрах глазодвигательных нервов, проводят возбуждение по соответствующим черепным нервам к мышцам глаза.
Die Reaktionszeit des VOR ist sehr kurz. Dies hängt damit zusammen, dass nur 3 hintereinander geschaltete Neurone benötigt werden, um die Reizung der Bogengänge auf die Augenmuskeln zu übertragen. Die Zellen des 1. Neurons liegen bei den Bogengängen im Ganglion vestibuli. Diese Zellen nehmen das Signal von der Kupula-Membran auf, verwandeln es in Aktionspotenziale und senden es zum Nucleus vestibularis in der Brücke. Dort befinden sich die Zellen des 2. Neurons, die das Signal zu den Augenmuskelkernen (III, IV und VI) senden. Die in den Augenmuskelkernen liegenden Zellen des 3. Neurons leiten die Erregung über die entsprechenden Hirnnerven zu den Augenmuskeln.
Исключением из этого трехнейронного рефлекса является только m. rectus medialis. Для него включен интернуклеарный нейрон, таким образом, рефлекторный путь состоит из 4 нейронов. Интернуклеарные нейроны берут начало в ядре отводящего нерва и после перекреста в медиальном продольном пучке идут к ядру глазодвигательного нерва (nucleus oculomotorius) (▶Рис. 1.44).
Eine Ausnahme von diesem Drei-Neuronen-Reflex macht nur der M. rectus medialis. Für ihn ist ein internukleäres Neuron zwischengeschaltet, so dass die Reflexbahn aus 4 Neuronen besteht. Die internukleären Neurone entspringen im Abduzenskern und ziehen nach Kreuzung im medialen longitudinalen Faszikulus zum Nucleus oculomotorius (▶Abb. 1.44).