Die Optokinetik wird danach beurteilt, ob die Geschwindigkeit der langsamen Nystagmusphasen in angemessenem Verhältnis zur Geschwindigkeit des Reizes steht. Die Frequenz des Nystagmus ist nicht maßgebend, denn zwei kleine Nystagmusschläge sind einem großen Nystagmusschlag gleichwertig, wenn nur die Geschwindigkeit der langsamen Nystagmusphasen gleich ist.
Wichtig ist, ob der optokinetische Nystagmus bei Reizbewegung nach rechts und links gleich gut auslösbar ist.
Eine Differenz zwischen oben und unten ist meist nicht krankhaft. Normalerweise ist die Optokinetik bei Reizbewegung nach unten schwächer.
Spiegelraumbewegung
Eine sog. Spiegelraumbewegung [46] ergibt sich, wenn man den Patienten in einen Spiegel schauen lässt, den man um die vertikale bzw. die horizontale Achse dreht. Geeignet sind z. B. die über Waschbecken angebrachten Wandspiegel. Für den Patienten scheint sich der in die Tiefe gestaffelte Raum zu bewegen. Blickt er ohne besondere Fixationsabsicht geradeaus in den Raum, so entsteht ein optokinetischer Nystagmus. Fixiert er bestimmte Details, z. B. sein eigenes Spiegelbild, so ergeben sich Augenfolgebewegungen.
Bei konventionellen optokinetischen Reizen gelingt es manchen Personen, die Augen durch Konzentration auf einen hinter dem Reiz liegenden imaginären Fixierpunkt ruhig zu halten. Einer Spiegelraumbewegung kann man sich dagegen kaum entziehen, da sich sowohl nahe als auch ferne Objekte bewegen. Die Spiegelraumbewegung kann daher genutzt werden, um eine vorgebliche Augenbewegungsstörung oder Blindheit zu widerlegen. Außerdem eignet sich die Spiegelraumbewegung bei Säuglingen und Kleinkindern zum Nachweis der optokinetischen Funktion.
Physiologische Grundlagen
Das Folgesystem und die Optokinetik wirken häufig zusammen. Oft kommt es aber zum Wettstreit beider Systeme. Dann entscheidet die Aufmerksamkeitszuwendung, ob ein kleines Sehobjekt eine Augenfolgebewegung auslöst oder ob ausgedehnte Konturen einen optokinetischen Nystagmus hervorrufen. Wenn man z. B. einen Vogel beobachten will, der vor windgepeitschten Wolken fliegt, gewinnt das Folgesystem, und das Bild des Vogels bleibt auf der Netzhautmitte, während die Verschiebung der Wolkenbilder über die Netzhaut ohne Wirkung bleibt. Auch vor ruhenden Konturen kann sich ein Wettstreit zwischen Optokinetik und Folgesystem ergeben. Man kann dies an sich selbst erproben, indem man seinen Finger vor einer bebilderten Wand hin und her bewegt. Wenn man die Aufmerksamkeit auf den Finger konzentriert, gewinnt das foveale Folgesystem und die optokinetische Reizung der Netzhautperipherie bleibt wirkungslos.
Wie werden Augenfolgebewegung und Optokinetik ausgelöst und in Gang gehalten? Beginnt sich ein Objekt zu bewegen, so verschiebt sich sein Bild über die Netzhaut. Dieser Reiz startet die Augenfolgebewegung bzw. die Optokinetik. Je mehr sich die Winkelgeschwindigkeit der Augen der des Objekts anpasst, umso weniger verschiebt sich das Bild über die Netzhaut. Dennoch hören die Augen nicht auf, dem Objekt zu folgen, denn das Gehirn ist über die aktuelle Augenbewegung informiert, es gibt ja selbst den Befehl dazu. Ein Fehlen der retinalen Bildverschiebung nimmt das Gehirn dann als Bestätigung dafür, dass die Bewegung fortzusetzen sei. Folgen die Augen zu langsam oder zu schnell, verschiebt sich das Netzhautbild erneut. Dies veranlasst das Gehirn, die Geschwindigkeit der Augenbewegung zu korrigieren.
Im Gegensatz zur Optokinetik reagiert das Folgesystem nicht nur auf Verschiebung, sondern auch auf die Position des Netzhautbilds. Eine Abbildung des Fixierobjekts dicht neben der Foveola regt nicht nur Sakkaden an, sondern stimuliert auch das Folgesystem. Das kann man z. B. am Verfolgen eines parazentral eingeblitzten Nachbilds studieren. Das Nachbild scheint zu schwimmen und zieht dabei den Blick nicht in Rucken, sondern gleitend mit sich [33], [44]. Im täglichen Leben dient dieser Mechanismus dazu, das Bild eines bewegten, dem Blick vorauseilenden Objekts auf die Foveola zu bringen.
Ein weiterer Unterschied zwischen optokinetischem und Folgesystem besteht darin, dass das Folgesystem auf einen plötzlichen Bewegungsreiz sofort anspricht, während das optokinetische System langsam reagiert und 10 Sekunden braucht, um sich dem Bewegungsreiz anzupassen. Diese Anpassung geschieht in den vestibulären Kernen, die wie ein Speicher funktionieren. Die Aufladung des Speichers zeigt sich als optokinetischer Nachnystagmus. Um ihn zu registrieren, muss man nach der Bewegungsreizung den Raum verdunkeln.
Da optokinetische Reize normalerweise auch das schnell reagierende Folgesystem in Gang setzen, findet man ein allmähliches Anlaufen der Optokinetik nur nach Läsionen, die isoliert das Folgesystem ausgeschaltet haben. Dies ist selten, da viele Strukturen des Gehirns gemeinsam vom optokinetischen und vom Folgesystem benutzt werden.
Anatomische Strukturen
Die Strukturen des Augenfolgesystems und der Optokinetik haben sich phylogenetisch viel stärker weiterentwickelt als das vestibuläre System, das bei niederen Tieren schon ziemlich ausgereift ist. Beim Menschen ist die Optokinetik an die Funktionstüchtigkeit der Hirnrinde gebunden, bei Tieren jedoch nicht. Selbst beim Affen, dessen okulomotorisches System ansonsten dem des Menschen weitgehend entspricht, ist die Optokinetik nach Abtragung der Hirnrinde nicht völlig ausgelöscht.
In den großen Ganglienzellen der Netzhaut beginnt die für das Sehen von Bewegung zuständige magnozelluläre Bahn. Im Gegensatz dazu beginnt in den kleinen Ganglienzellen der Netzhaut die parvozelluläre Bahn, die vorwiegend für das Erkennen von Form und Farbe zuständig ist. Die magnozelluläre Bahn sendet die Bewegungsinformation zum Corpus geniculatum laterale und weiter in die primäre Sehrinde. Von dort wird die Bewegungsinformation in andere Hirnrindenareale übertragen, insbesondere zu den beim Affen identifizierten Areae MT (mittlere temporale Area) und MST (mediale superiore temporale Area) und zum frontalen Augenfeld. Zusammen mit der primären Sehrinde bewerkstelligen MT, MST und das frontale Augenfeld den Übergang vom sensorischen auf das motorische System, d. h. sie bringen die Folgebewegungen und die Optokinetik in Gang. Die Areale des Menschen, die der MT und der MST des Affen entsprechen, liegen an der Grenze zwischen temporalem, parietalem und okzipitalem Lappen (▶Abb. 1.39).
Es genügt die primäre Sehrinde einer Seite, um Folgebewegungen und langsame Phasen des optokinetischen Nystagmus nach beiden Seiten auszulösen. Daher bleiben Folgebewegung und Optokinetik bei Ausfall einer Sehrindenhälfte mit entsprechender homonymer Hemianopie erhalten. Unterhalb der Sehrinde sortieren sich aber die Bahnen so, dass die Fasern für rechts gerichtete Folgebewegungen und langsame Nystagmusphasen im rechten, die für links gerichtete im linken parietookzipitalen Marklager verlaufen (▶Abb. 1.42a, b). Eine Läsion des parietookzipitalen Marklagers kann also zu einem Halbseitenausfall der Folgebewegung und der Optokinetik führen, im Gegensatz zu einer auf die Sehrinde beschränkten Läsion [32]. Damit eine Sehrindenhälfte auch zur Gegenseite gerichtete Folgebewegungen und langsame Nystagmusphasen auslösen kann, muss sie über den Balken zusätzlich in das gegenseitige parietookzipitale Marklager projizieren (▶Abb. 1.42a, b).
Von der Hirnrinde (MT-MST) gelangt die Bewegungsinformation zum dorsolateralen pontinen Nukleus (DLPN) [18]. Vom DLPN kreuzt die Bewegungsinformation zum Kleinhirn, insbesondere zum hinteren Kleinhirnwurm und zum Flocculus. Schließlich wird die Bewegungsinformation zu den vestibulären Nuklei (VN) weitergeleitet. Die vestibulären Nuklei fungieren dann als gemeinsame Befehlsstation für alle langsamen Augenbewegungen, also sowohl für die visuellen als auch für die vestibulären. Die vestibulären Nuklei projizieren in die Augenmuskelkerne, teils direkt, teils über den als Integrator wirkenden Nucleus praepositus hypoglossi. Der Weg von MT und MST über den dorsolateralen pontinen Nukleus (DLPN) und das Zerebellum ist für die Folgebewegung der wichtigste [34].
Außerdem spielt das akzessorische optische System (AOS) eine erhebliche Rolle, vorwiegend bei großflächigen optokinetischen Reizen. Umschaltstationen des AOS sind der Nukleus des optischen Trakts (NOT) und der ihm benachbarte dorsale terminale Nukleus des akzessorischen optischen Trakts (DTN). Der NOT und der DTN liegen im Mittelhirn zwischen Colliculus superior und Pulvinar. Der rechte NOT-DTN ist für rechts gerichtete und der linke NOT-DTN für links gerichtete Folgebewegungen und langsame Phasen des OKN zuständig (▶Abb. 1.42a, b).
Bei Tieren mit seitlich angeordneten Augen, wie z. B. dem Kaninchen, erhält der NOT-DTN die Bewegungsmeldung nur von der gegenseitigen Netzhaut, nicht über die Hirnrinde (gestrichelte Pfeile in ▼Abb. 1.42a, b). Wenn nur ein Auge gereizt wird, ist die Optokinetik des Kaninchens asymmetrisch: Nur die nach nasal gerichtete Bewegung führt zu Nystagmus.
Beim Menschen spielt die subkortikale Bahn zum NOT- DTN nur in den ersten 2–3 Lebensmonaten eine Rolle. Entsprechend zeigt sich bei monokularer Reizung nur im Säuglingsalter eine deutliche nasotemporale Asymmetrie der Optokinetik. Die nach temporal gerichtete Bewegung wirkt sich schwächer aus als die nach nasal gerichtete [25]. Mit weiterer Reifung und Ausbildung des Binokularsehens übernimmt die Sehrinde plus MT und MST die Übertragung der Optokinetik [17], [28]. Danach wirkt eine monokulare, nach temporal gerichtete Reizung nahezu gleich stark wie eine nach nasal gerichtete [36], [42], [59]. Nur beim frühkindlichen Schielen kann die nasotemporale Asymmetrie zeitlebens bestehen bleiben.
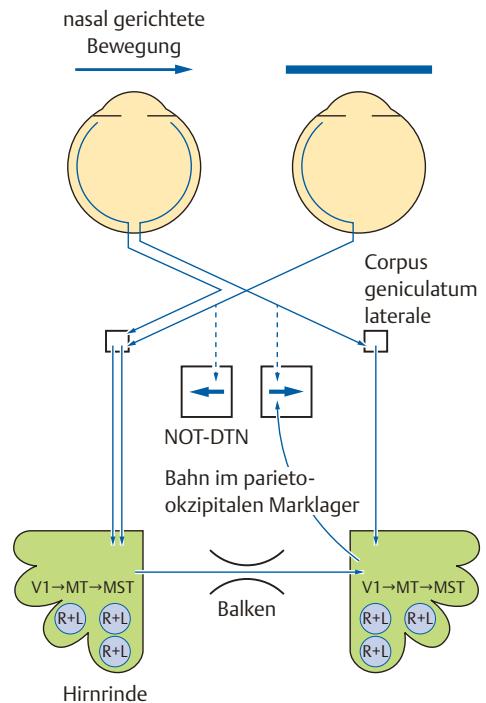
a Area V1 mit Binokularzellen