Оптокинетика оценивается по тому, находится ли скорость медленных фаз нистагма в соответствующем соотношении со скоростью стимула. Частота нистагма не является определяющей, так как два малых удара нистагма эквивалентны одному большому удару нистагма, если только скорость медленных фаз нистагма одинакова.
Die Optokinetik wird danach beurteilt, ob die Geschwindigkeit der langsamen Nystagmusphasen in angemessenem Verhältnis zur Geschwindigkeit des Reizes steht. Die Frequenz des Nystagmus ist nicht maßgebend, denn zwei kleine Nystagmusschläge sind einem großen Nystagmusschlag gleichwertig, wenn nur die Geschwindigkeit der langsamen Nystagmusphasen gleich ist.
Важно, одинаково ли легко вызывается оптокинетический нистагм при движении стимула вправо и влево.
Wichtig ist, ob der optokinetische Nystagmus bei Reizbewegung nach rechts und links gleich gut auslösbar ist.
Разница между верхним и нижним направлениями обычно не является патологической. Как правило, оптокинетика при движении стимула вниз выражена слабее.
Eine Differenz zwischen oben und unten ist meist nicht krankhaft. Normalerweise ist die Optokinetik bei Reizbewegung nach unten schwächer.
Движение зеркального пространства
Spiegelraumbewegung
Так называемое движение зеркального пространства [46] возникает, если заставить пациента смотреть в зеркало, которое вращают вокруг вертикальной или горизонтальной оси. Подходящими являются, например, настенные зеркала, установленные над раковинами. Пациенту кажется, что пространство, распределенное в глубину, движется. Если он смотрит прямо в пространство без специального намерения зафиксировать взгляд, возникает оптокинетический нистагм. Если же он фиксирует определенные детали, например, собственное отражение, возникают плавные следящие движения глаз.
Eine sog. Spiegelraumbewegung [46] ergibt sich, wenn man den Patienten in einen Spiegel schauen lässt, den man um die vertikale bzw. die horizontale Achse dreht. Geeignet sind z. B. die über Waschbecken angebrachten Wandspiegel. Für den Patienten scheint sich der in die Tiefe gestaffelte Raum zu bewegen. Blickt er ohne besondere Fixationsabsicht geradeaus in den Raum, so entsteht ein optokinetischer Nystagmus. Fixiert er bestimmte Details, z. B. sein eigenes Spiegelbild, so ergeben sich Augenfolgebewegungen.
При традиционных оптокинетических стимулах некоторым людям удается удерживать глаза неподвижными, концентрируясь на воображаемой точке фиксации, расположенной за стимулом. От движения зеркального пространства, напротив, практически невозможно уклониться, так как движутся как ближние, так и дальние объекты. Поэтому движение зеркального пространства может быть использовано для опровержения мнимого нарушения движений глаз или слепоты. Кроме того, движение зеркального пространства применимо у младенцев и маленьких детей для проверки оптокинетической функции.
Bei konventionellen optokinetischen Reizen gelingt es manchen Personen, die Augen durch Konzentration auf einen hinter dem Reiz liegenden imaginären Fixierpunkt ruhig zu halten. Einer Spiegelraumbewegung kann man sich dagegen kaum entziehen, da sich sowohl nahe als auch ferne Objekte bewegen. Die Spiegelraumbewegung kann daher genutzt werden, um eine vorgebliche Augenbewegungsstörung oder Blindheit zu widerlegen. Außerdem eignet sich die Spiegelraumbewegung bei Säuglingen und Kleinkindern zum Nachweis der optokinetischen Funktion.
Физиологические основы
Physiologische Grundlagen
Система слежения и оптокинетика часто взаимодействуют. Однако часто возникает конкуренция между обеими системами. В этом случае распределение внимания определяет, вызовет ли маленький зрительный объект следящее движение глаз или же обширные контуры спровоцируют оптокинетический нистагм. Если, например, человек хочет наблюдать за птицей, летящей на фоне гонимых ветром облаков, побеждает система слежения, и изображение птицы остается в центре сетчатки, в то время как смещение изображений облаков по сетчатке остается без эффекта. Конкуренция между оптокинетикой и системой слежения может возникнуть и перед неподвижными контурами. Это можно проверить на себе, перемещая палец взад-вперед перед стеной с изображениями. Если сконцентрировать внимание на пальце, побеждает фовеальная система слежения, а оптокинетическая стимуляция периферии сетчатки остается безрезультатной.
Das Folgesystem und die Optokinetik wirken häufig zusammen. Oft kommt es aber zum Wettstreit beider Systeme. Dann entscheidet die Aufmerksamkeitszuwendung, ob ein kleines Sehobjekt eine Augenfolgebewegung auslöst oder ob ausgedehnte Konturen einen optokinetischen Nystagmus hervorrufen. Wenn man z. B. einen Vogel beobachten will, der vor windgepeitschten Wolken fliegt, gewinnt das Folgesystem, und das Bild des Vogels bleibt auf der Netzhautmitte, während die Verschiebung der Wolkenbilder über die Netzhaut ohne Wirkung bleibt. Auch vor ruhenden Konturen kann sich ein Wettstreit zwischen Optokinetik und Folgesystem ergeben. Man kann dies an sich selbst erproben, indem man seinen Finger vor einer bebilderten Wand hin und her bewegt. Wenn man die Aufmerksamkeit auf den Finger konzentriert, gewinnt das foveale Folgesystem und die optokinetische Reizung der Netzhautperipherie bleibt wirkungslos.
Как запускаются и поддерживаются следящие движения глаз и оптокинетика? Когда объект начинает двигаться, его изображение смещается по сетчатке. Этот стимул запускает следящее движение глаз или оптокинетику. Чем больше угловая скорость глаз адаптируется к скорости объекта, тем меньше смещается изображение по сетчатке. Тем не менее глаза не перестают следовать за объектом, так как мозг информирован о текущем движении глаз, поскольку он сам отдает соответствующую команду. Отсутствие ретинального смещения изображения воспринимается мозгом как подтверждение того, что движение следует продолжать. Если глаза следуют слишком медленно или слишком быстро, изображение на сетчатке снова смещается. Это побуждает мозг скорректировать скорость движения глаз.
Wie werden Augenfolgebewegung und Optokinetik ausgelöst und in Gang gehalten? Beginnt sich ein Objekt zu bewegen, so verschiebt sich sein Bild über die Netzhaut. Dieser Reiz startet die Augenfolgebewegung bzw. die Optokinetik. Je mehr sich die Winkelgeschwindigkeit der Augen der des Objekts anpasst, umso weniger verschiebt sich das Bild über die Netzhaut. Dennoch hören die Augen nicht auf, dem Objekt zu folgen, denn das Gehirn ist über die aktuelle Augenbewegung informiert, es gibt ja selbst den Befehl dazu. Ein Fehlen der retinalen Bildverschiebung nimmt das Gehirn dann als Bestätigung dafür, dass die Bewegung fortzusetzen sei. Folgen die Augen zu langsam oder zu schnell, verschiebt sich das Netzhautbild erneut. Dies veranlasst das Gehirn, die Geschwindigkeit der Augenbewegung zu korrigieren.
В отличие от оптокинетики, система слежения реагирует не только на смещение, но и на положение изображения на сетчатке. Проекция объекта фиксации в непосредственной близости от фовеолы стимулирует не только саккады, но и систему слежения. Это можно изучить, например, при отслеживании парацентрального вспышечного послеобраза. Послеобраз кажется плавающим и влечет за собой взгляд не рывками, а плавно [33], [44]. В повседневной жизни этот механизм служит для того, чтобы привести изображение движущегося объекта, опережающего взгляд, на фовеолу.
Im Gegensatz zur Optokinetik reagiert das Folgesystem nicht nur auf Verschiebung, sondern auch auf die Position des Netzhautbilds. Eine Abbildung des Fixierobjekts dicht neben der Foveola regt nicht nur Sakkaden an, sondern stimuliert auch das Folgesystem. Das kann man z. B. am Verfolgen eines parazentral eingeblitzten Nachbilds studieren. Das Nachbild scheint zu schwimmen und zieht dabei den Blick nicht in Rucken, sondern gleitend mit sich [33], [44]. Im täglichen Leben dient dieser Mechanismus dazu, das Bild eines bewegten, dem Blick vorauseilenden Objekts auf die Foveola zu bringen.
Еще одно различие между оптокинетической системой и системой слежения заключается в том, что система слежения мгновенно реагирует на внезапный двигательный стимул, в то время как оптокинетическая система реагирует медленно и нуждается в 10 секундах для адаптации к двигательному стимулу. Эта адаптация происходит в вестибулярных ядрах, которые функционируют как накопитель. Зарядка этого накопителя проявляется в виде оптокинетического посленистагма. Чтобы его зарегистрировать, после двигательной стимуляции необходимо затемнить помещение.
Ein weiterer Unterschied zwischen optokinetischem und Folgesystem besteht darin, dass das Folgesystem auf einen plötzlichen Bewegungsreiz sofort anspricht, während das optokinetische System langsam reagiert und 10 Sekunden braucht, um sich dem Bewegungsreiz anzupassen. Diese Anpassung geschieht in den vestibulären Kernen, die wie ein Speicher funktionieren. Die Aufladung des Speichers zeigt sich als optokinetischer Nachnystagmus. Um ihn zu registrieren, muss man nach der Bewegungsreizung den Raum verdunkeln.
Поскольку оптокинетические стимулы обычно запускают и быстро реагирующую систему слежения, постепенный запуск оптокинетики обнаруживается только после поражений, которые изолированно отключили систему слежения. Это встречается редко, так как многие структуры мозга используются совместно оптокинетической системой и системой слежения.
Da optokinetische Reize normalerweise auch das schnell reagierende Folgesystem in Gang setzen, findet man ein allmähliches Anlaufen der Optokinetik nur nach Läsionen, die isoliert das Folgesystem ausgeschaltet haben. Dies ist selten, da viele Strukturen des Gehirns gemeinsam vom optokinetischen und vom Folgesystem benutzt werden.
Анатомические структуры
Anatomische Strukturen
Структуры системы плавного следования глаз и оптокинетики в филогенетическом отношении развились гораздо сильнее, чем вестибулярная система, которая у низших животных уже достаточно совершенна. У человека оптокинетика связана с функциональностью коры головного мозга, тогда как у животных — нет. Даже у обезьяны, чья окуломоторная система в остальном в значительной степени соответствует человеческой, оптокинетика не исчезает полностью после удаления коры головного мозга.
Die Strukturen des Augenfolgesystems und der Optokinetik haben sich phylogenetisch viel stärker weiterentwickelt als das vestibuläre System, das bei niederen Tieren schon ziemlich ausgereift ist. Beim Menschen ist die Optokinetik an die Funktionstüchtigkeit der Hirnrinde gebunden, bei Tieren jedoch nicht. Selbst beim Affen, dessen okulomotorisches System ansonsten dem des Menschen weitgehend entspricht, ist die Optokinetik nach Abtragung der Hirnrinde nicht völlig ausgelöscht.
В крупных ганглионарных клетках сетчатки начинается магноцеллюлярный путь, отвечающий за восприятие движения. Напротив, в мелких ганглионарных клетках сетчатки начинается парвоцеллюлярный путь, который в основном отвечает за распознавание формы и цвета. Магноцеллюлярный путь передает информацию о движении в латеральное коленчатое тело (corpus geniculatum laterale) и далее в первичную зрительную кору. Оттуда информация о движении передается в другие области коры, в частности, в идентифицированные у обезьян области MT (средняя височная область) и MST (медиальная верхняя височная область), а также в фронтальное поле глаз. Совместно с первичной зрительной корой MT, MST и фронтальное поле глаз осуществляют переход от сенсорной к моторной системе, то есть запускают плавные следящие движения и оптокинетику. Области человека, соответствующие MT и MST обезьяны, расположены на границе височной, теменной и затылочной долей (▶Рис. 1.39).
In den großen Ganglienzellen der Netzhaut beginnt die für das Sehen von Bewegung zuständige magnozelluläre Bahn. Im Gegensatz dazu beginnt in den kleinen Ganglienzellen der Netzhaut die parvozelluläre Bahn, die vorwiegend für das Erkennen von Form und Farbe zuständig ist. Die magnozelluläre Bahn sendet die Bewegungsinformation zum Corpus geniculatum laterale und weiter in die primäre Sehrinde. Von dort wird die Bewegungsinformation in andere Hirnrindenareale übertragen, insbesondere zu den beim Affen identifizierten Areae MT (mittlere temporale Area) und MST (mediale superiore temporale Area) und zum frontalen Augenfeld. Zusammen mit der primären Sehrinde bewerkstelligen MT, MST und das frontale Augenfeld den Übergang vom sensorischen auf das motorische System, d. h. sie bringen die Folgebewegungen und die Optokinetik in Gang. Die Areale des Menschen, die der MT und der MST des Affen entsprechen, liegen an der Grenze zwischen temporalem, parietalem und okzipitalem Lappen (▶Abb. 1.39).
Для запуска следящих движений и медленных фаз оптокинетического нистагма в обе стороны достаточно первичной зрительной коры одной стороны. Поэтому следящие движения и оптокинетика сохраняются при выпадении одной половины зрительной коры с соответствующей гомонимной гемианопсией. Однако ниже зрительной коры пути распределяются таким образом, что волокна, отвечающие за следящие движения вправо и медленные фазы нистагма, проходят в правом, а волокна для движений влево — в левом теменно-затылочном белом веществе (▶Рис. 1.42a, b). Таким образом, поражение теменно-затылочного белого вещества может привести к одностороннему выпадению следящих движений и оптокинетики, в отличие от поражения, ограниченного зрительной корой [32]. Чтобы половина зрительной коры могла также запускать следящие движения и медленные фазы нистагма в противоположную сторону, она должна дополнительно проецироваться через мозольтое тело в противоположное теменно-затылочное белое вещество (▶Рис. 1.42a, b).
Es genügt die primäre Sehrinde einer Seite, um Folgebewegungen und langsame Phasen des optokinetischen Nystagmus nach beiden Seiten auszulösen. Daher bleiben Folgebewegung und Optokinetik bei Ausfall einer Sehrindenhälfte mit entsprechender homonymer Hemianopie erhalten. Unterhalb der Sehrinde sortieren sich aber die Bahnen so, dass die Fasern für rechts gerichtete Folgebewegungen und langsame Nystagmusphasen im rechten, die für links gerichtete im linken parietookzipitalen Marklager verlaufen (▶Abb. 1.42a, b). Eine Läsion des parietookzipitalen Marklagers kann also zu einem Halbseitenausfall der Folgebewegung und der Optokinetik führen, im Gegensatz zu einer auf die Sehrinde beschränkten Läsion [32]. Damit eine Sehrindenhälfte auch zur Gegenseite gerichtete Folgebewegungen und langsame Nystagmusphasen auslösen kann, muss sie über den Balken zusätzlich in das gegenseitige parietookzipitale Marklager projizieren (▶Abb. 1.42a, b).
От коры головного мозга (MT-MST) информация о движении поступает в дорсолатеральное pontine ядро (DLPN) [18]. Из DLPN информация о движении перекрестно поступает в мозжечок, в частности в задний червь мозжечка и в flocculus. Наконец, информация о движении передается в вестибулярные ядра (VN). Вестибулярные ядра затем функционируют как общий командный центр для всех медленных движений глаз, то есть как для визуальных, так и для вестибулярных. Вестибулярные ядра проецируются в ядра глазодвигательных мышц, частично напрямую, частично через nucleus praepositus hypoglossi, который действует как интегратор. Путь от MT и MST через дорсолатеральное pontine ядро (DLPN) и мозжечок является наиболее важным для плавного следования [34].
Von der Hirnrinde (MT-MST) gelangt die Bewegungsinformation zum dorsolateralen pontinen Nukleus (DLPN) [18]. Vom DLPN kreuzt die Bewegungsinformation zum Kleinhirn, insbesondere zum hinteren Kleinhirnwurm und zum Flocculus. Schließlich wird die Bewegungsinformation zu den vestibulären Nuklei (VN) weitergeleitet. Die vestibulären Nuklei fungieren dann als gemeinsame Befehlsstation für alle langsamen Augenbewegungen, also sowohl für die visuellen als auch für die vestibulären. Die vestibulären Nuklei projizieren in die Augenmuskelkerne, teils direkt, teils über den als Integrator wirkenden Nucleus praepositus hypoglossi. Der Weg von MT und MST über den dorsolateralen pontinen Nukleus (DLPN) und das Zerebellum ist für die Folgebewegung der wichtigste [34].
Кроме того, значительную роль играет добавочная оптическая система (AOS), преимущественно при обширных оптокинетических стимулах. Переключающими станциями AOS являются ядро зрительного тракта (NOT) и прилегающее к нему дорсальное терминальное ядро добавочного зрительного тракта (DTN). NOT и DTN расположены в среднем мозге между верхним холмиком (colliculus superior) и пульвинаром. Правый NOT-DTN отвечает за следящие движения вправо, а левый NOT-DTN — за следящие движения влево и медленные фазы OKN (▶Рис. 1.42a, b).
Außerdem spielt das akzessorische optische System (AOS) eine erhebliche Rolle, vorwiegend bei großflächigen optokinetischen Reizen. Umschaltstationen des AOS sind der Nukleus des optischen Trakts (NOT) und der ihm benachbarte dorsale terminale Nukleus des akzessorischen optischen Trakts (DTN). Der NOT und der DTN liegen im Mittelhirn zwischen Colliculus superior und Pulvinar. Der rechte NOT-DTN ist für rechts gerichtete und der linke NOT-DTN für links gerichtete Folgebewegungen und langsame Phasen des OKN zuständig (▶Abb. 1.42a, b).
У животных с латерально расположенными глазами, например у кролика, NOT-DTN получает сигнал о движении только от противоположной сетчатки, а не через кору головного мозга (пунктирные стрелки на ▼Рис. 1.42a, b). Если стимулируется только один глаз, оптокинетика кролика асимметрична: только движение, направленное назально, приводит к нистагму.
Bei Tieren mit seitlich angeordneten Augen, wie z. B. dem Kaninchen, erhält der NOT-DTN die Bewegungsmeldung nur von der gegenseitigen Netzhaut, nicht über die Hirnrinde (gestrichelte Pfeile in ▼Abb. 1.42a, b). Wenn nur ein Auge gereizt wird, ist die Optokinetik des Kaninchens asymmetrisch: Nur die nach nasal gerichtete Bewegung führt zu Nystagmus.
У человека субкортикальный путь к NOT-DTN играет роль только в первые 2–3 месяца жизни. Соответственно, при монокулярной стимуляции выраженная назотемпоральная асимметрия оптокинетики наблюдается только в младенческом возрасте. Движение, направленное темпорально, оказывает более слабое воздействие, чем движение, направленное назально [25]. По мере дальнейшего созревания и формирования бинокулярного зрения передача оптокинетики переходит к зрительной коре плюс MT и MST [17], [28]. После этого монокулярная стимуляция, направленная темпорально, действует почти так же сильно, как и направленная назально [36], [42], [59]. Только при косоглазии в раннем детстве назотемпоральная асимметрия может сохраняться пожизненно.
Beim Menschen spielt die subkortikale Bahn zum NOT- DTN nur in den ersten 2–3 Lebensmonaten eine Rolle. Entsprechend zeigt sich bei monokularer Reizung nur im Säuglingsalter eine deutliche nasotemporale Asymmetrie der Optokinetik. Die nach temporal gerichtete Bewegung wirkt sich schwächer aus als die nach nasal gerichtete [25]. Mit weiterer Reifung und Ausbildung des Binokularsehens übernimmt die Sehrinde plus MT und MST die Übertragung der Optokinetik [17], [28]. Danach wirkt eine monokulare, nach temporal gerichtete Reizung nahezu gleich stark wie eine nach nasal gerichtete [36], [42], [59]. Nur beim frühkindlichen Schielen kann die nasotemporale Asymmetrie zeitlebens bestehen bleiben.
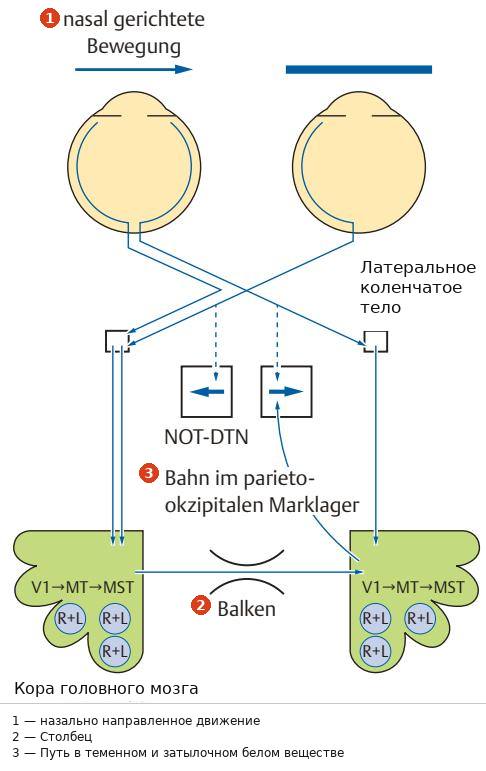
a Область V1 с бинокулярными клетками
a Area V1 mit Binokularzellen