Vergenz
Im Mittelhirn, in der Nähe des Okulomotoriuskerngebiets, gibt es supranukleäre Zellen, die ihre Aktivität bei Konvergenz und Divergenz ändern [22], [23]. Von diesen Zellen gibt es Bahnen zu den einzelnen Augenmuskelkernen, welche bei Konvergenz die Mm. recti mediales aktivieren und die Mm. recti laterales hemmen. Demnach kann man das Zentrum für Vergenzen im Mittelhirn verorten.
Bei Erscheinen der ersten beiden Auflagen dieses Buches galt noch die Meinung, dass für eine bestimmte Augenstellung immer dieselben Muskelfasern in gleicher Stärke innerviert würden, gleichgültig, ob das Auge durch eine Version oder eine Vergenz dorthin gelangt ist. Man sprach von einer gemeinsamen Endstrecke (Final common Pathway) für Version und Vergenz. Neue Untersuchungen haben jedoch gezeigt, dass diese Vorstellung nicht ganz zutrifft [15], [40]. Auch supranukleär unterscheidet sich die Ansteuerung des M.-rectus-medialis- Gebiets im Okulomotoriuskern und Abduzenskern je nachdem, ob ein Auge über eine Vergenz oder eine Version in eine bestimmte Stellung gebracht wird ([34], S. 536).
1.2.5 Supranukleäre Organisation der Okulomotorik
Die den okulomotorischen Kernen III, IV und VI vorgeschalteten Strukturen haben einerseits die Aufgabe, die beiden Augen zu koordinieren, andererseits müssen sie die Innervationsmuster für die in ▶Abb. 1.32 aufgeführten Bewegungstypen herstellen.
Rasche Augenbewegungen: Sakkaden und rasche Nystagmusphasen
Merke
Die raschen Augenbewegungen dienen dazu, die Fovea centralis möglichst schnell auf Objekte besonderen Interesses zu richten.
Prüfung der Blickzielbewegungen
Der Patient erhält die Aufgabe, zwischen zwei kleinen Objekten hin und her zu blicken. Als Ziele haben sich die Enden eines ausziehbaren Stabes bewährt, an denen die Zeigefinger des Untersuchers etwa alle 2 Sekunden abwechselnd „winken“ (▶Abb. 1.37). Die Fixierobjekte sollten unter einem Sehwinkel von etwa 20° dargeboten werden. Größere Winkel überwinden auch Gesunde nur mit Nachstellrucken. In der Regel genügt es, die Blickzielbewegungen zwischen Fixierobjekten zu prüfen, die symmetrisch um die Mitte angeordnet sind, also zwischen 10° rechts und 10° links sowie zwischen 10° oben und 10° unten. Achten sollte man sowohl auf die Geschwindigkeit als auch auf die Zielsicherheit. Die Geschwindigkeit der Blickzielbewegungen hängt von ihrer Amplitude ab. Große Blickzielbewegungen erreichen eine Geschwindigkeit von 700°/s.
Physiologische Grundlagen
Die bei einer Sakkade in den Augenmuskeln registrierten Innervationsänderungen zeigt ▶Abb. 1.38. Während der Sakkade erhält der Agonist einen Innervationsstoß. Gleichzeitig wird der Antagonist abgeschaltet. Diese nur während der Sakkade eintretenden Innervationsänderungen werden als Puls bezeichnet. Der Puls dient dazu, das Auge zu beschleunigen und dabei die Reibung in den orbitalen Geweben zu überwinden. Nach dem Puls stellt sich ein neues Innervationsniveau ein, das im Agonisten höher, im Antagonisten niedriger liegt als vor der Sakkade. Diese bleibende Innervationsänderung wird Stufe genannt. Die Stufe dient dazu, das Auge gegen den elastischen Zug der orbitalen Gewebe in der neuen Stellung zu halten.
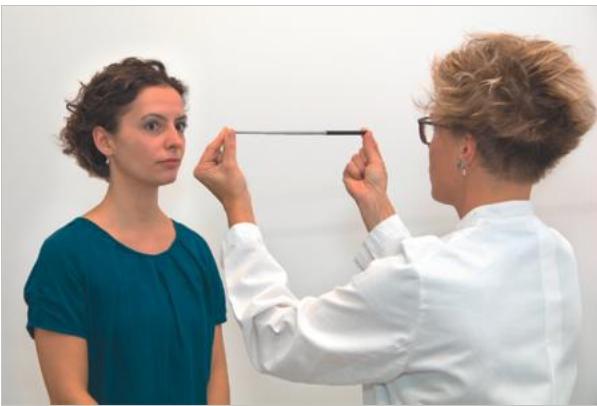
Abb. 1.37 Prüfung der Blickzielbewegungen.
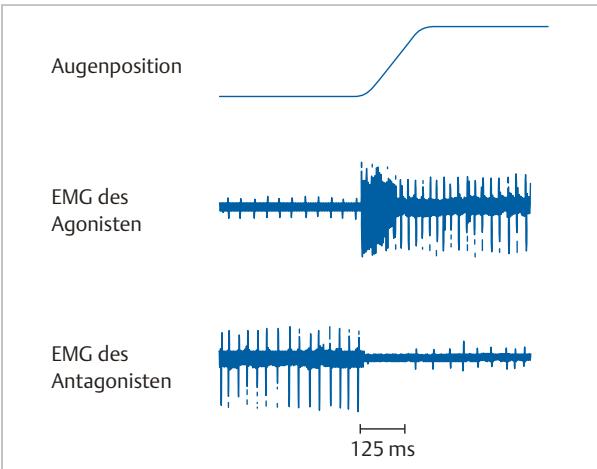
Abb. 1.38 Innervationsänderungen bei einer Sakkade. Das Elektromyogramm (EMG) wurde mit einer Nadelelektrode aufgenommen. Es zeigt als „Stichprobe“ nur jene motorischen Einheiten, die sich im Einzugsbereich der Nadelspitze befanden. EMG des Agonisten: In der Ausgangsposition (links) ist nur eine motorische Einheit mit niedriger Entladungsfrequenz aktiv. In der Endposition (rechts) entlädt diese Einheit mit höherer Frequenz; außerdem arbeitet in der Endposition noch eine zweite motorische Einheit. Der Innervationsunterschied zwischen Ausgangs- und Endposition wird als Stufe bezeichnet. Während der Sakkade findet sich ein Puls von etwa 125 ms Dauer. Während des Pulses entladen alle motorischen Einheiten mit maximaler Frequenz. EMG des Antagonisten: Reziproke Innervationsänderungen bei Stufe und Puls. (Die Registrierung im Agonisten und Antagonisten erfolgte nicht synchron; vielmehr wurden passende Kurvenabschnitte untereinander montiert. Die Augenposition wurde gezeichnet.)
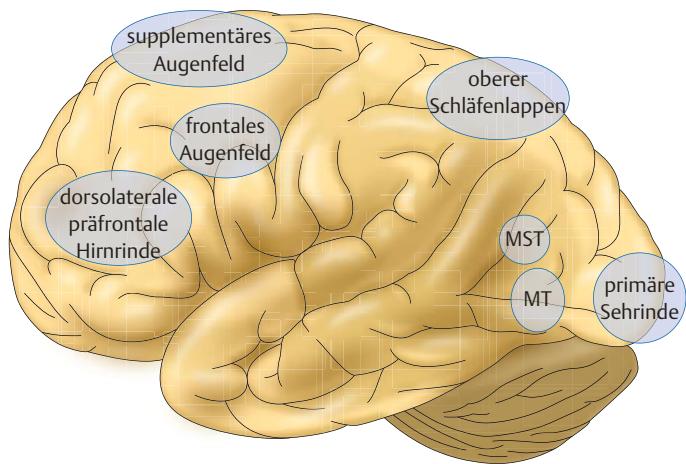
Abb. 1.39 Areale der Hirnrinde, die bei der Auswahl von Blickzielen und bei Augenfolgebewegungen beteiligt sind. In der primären Sehrinde (V1) werden die Details der Sehobjekte analysiert, unabhängig davon, ob sie von Bedeutung sind oder nicht. Von der primären Sehrinde erfolgt eine Meldung in weitere Areale der Hirnrinde. Durch Zusammenarbeit dieser Areale wird entschieden, ob eine Sakkade ausgelöst wird oder nicht. MST (mediale superiore temporale Area) und MT sind für Folgebewegungen und Optokinetik zuständig. Weitere Details siehe [34].
Für die horizontalen Sakkaden wird der Puls in der paramedianen pontinen retikulären Formation (PPRF) hergestellt, für die vertikalen Augenbewegungen im rostralen interstitiellen Kern des medialen longitudinalen Faszikulus (riMLF; ▶Abb. 1.36). Der mediale untere Anteil der PPRF hat eine übergeordnete Funktion: Er bringt sowohl die horizontalen als auch die vertikalen Sakkaden in Gang. Bei schrägen Sakkaden koordiniert er die horizontale und die vertikale Komponente.
Um das Innervationsmuster für die Stufe zu bilden, wird die Innervation von der PPRF nicht nur direkt zum Abduzenskern geleitet, sondern auch indirekt über einen Integrator. Für die horizontalen Sakkaden dient der in der Brücke gelegene Nucleus praepositus hypoglossi (NP) als Integrator, für die vertikalen Sakkaden der interstitiale Nucleus von Cajal (IC) im Mittelhirn.
Puls und Stufe werden durch das Kleinhirn so genau aufeinander abgestimmt, dass die Augen ihr Ziel prompt erreichen und dort ruhig verharren [34]. Ist der Puls im Verhältnis zur Stufe zu klein, wird die Sakkade zu kurz und die Augen erreichen ihr Ziel erst mit einer nachfolgenden Drift. Ist die Stufe im Verhältnis zum Puls zu klein, driften die Augen nach der Sakkade zurück. Die Folge sind wiederholte Sakkaden zum Ziel und Rückdrifts, so dass ein Blickrichtungsnystagmus entsteht (siehe Kap. 4.3.3).