Система плавного слежения
Smooth-pursuit system
Система плавного слежения состоит из следующих структур (рис. 1-30):
The smooth-pursuit system consists of the following structures (Fig 1-30):
корковые структуры: области V1, V2, V3, V5 (средняя височная зрительная область), медиальная верхняя височная область, задняя теменная кора и фронтальное поле глаз
cortical structures: areas V1, V2, V3, V5 (middle temporal visual area), medial supe rior temporal area, posterior parietal cortex, and frontal eye field
подкорковая структура: задняя часть внутренней капсулы
subcortical structure: posterior portion of the internal capsule
нейронная сеть ствола мозга или премоторные нейроны: дорсолатеральные ядра моста и латеральные ядра моста
brainstem neural network or premotor neurons: dorsolateral pontine nuclei and lat eral pontine nuclei
проекции в мозжечок (флокулюс и дорсальный червь) и вестибулярные ядра
projections to the cerebellum (flocculus and dorsal vermis) and vestibular nuclei
Информацию о клинических нарушениях функции слежения см. в главе 9 данного тома.
For information on clinical disorders of the pursuit function, see Chapter 9 in this volume.
Подкорковые структуры
Subcortical Structures
Несколько подкорковых структур участвуют в ретрансляции информации между корой и стволом мозга для координации движений глаз:
Several subcortical structures are involved in relaying information between the cortex and the brainstem for coordination of eye movements:
SC: делится на 2 части:
SC: divided into 2 parts:
• поверхностная (дорсальная): получает сенсорный вход от зрительной коры и сетчатки
• superficial (dorsal): receives sensory input from the visual cortex and retina
• глубокая (вентральная) — stratum griseum profundum и stratum album profundum: генерируют моторный сигнал для премоторных структур
• deep (ventral)—stratum griseum profundum and stratum album profundum: gen erate the motor signal to premotor structures
BG (хвостатое ядро, скорлупа и ретикулярная часть черной субстанции): контролируют произвольные саккады и подавляют ненужные рефлекторные саккады
BG (caudate nucleus, putamen, and substantia nigra pars reticulata): controls volun tary saccades and inhibits unnecessary reflexive saccades
таламус (внутренняя медуллярная пластинка и пульвинар): программирует саккады
thalamus (internal medullary lamina and pulvinar): programs saccades

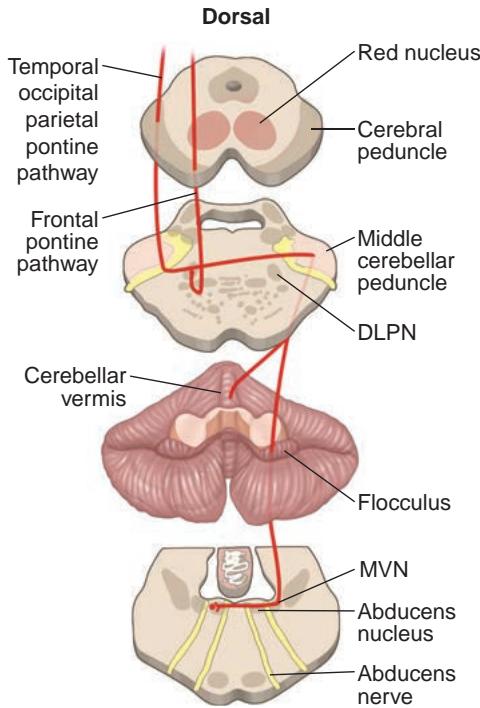
Рисунок 1-30 Система слежения. Движущийся объект создает сигналы в полосатой коре (V1) и оттуда в экстрастриатную кору (V2 и V3). Эти сигналы впоследствии ретранслируются в среднюю височную (MT) и медиальную верхнюю височную (MST) зрительные области, которые являются частью дорсального потока зрительной обработки, в заднюю теменную кору и фронтальное поле глаз (FEF). Нисходящие корковые пути височной, теменной и лобной доли иннервируют ипсилатеральное дорсолатеральное ядро моста (DLPN). Нейроны в DLPN перекрещиваются и проецируются на червь и флокулюс в контралатеральной доле мозжечка, которая иннервирует медиальное вестибулярное ядро (MVN). Затем нейроны VN перекрещиваются и проецируются в контралатеральное ядро CN VI. Ядро CN VI инициирует сопряженные горизонтальные движения глаз, иннервируя ипсилатеральную наружную прямую мышцу и, через интернуклеарные нейроны, проходящие в медиальном продольном пучке, контралатеральную внутреннюю прямую мышцу. (Иллюстрация Роба Флевелла, CMI.)
Figure 1-30 Pursuit system. A moving object creates signals in the striate cortex (V1) and from there to the extrastriate cortex (V2 and V3). These signals are subsequently relayed to the middle temporal (MT) and medial superior temporal (MST) visual areas, which are part of the dorsal visual processing stream, the pos terior parietal cortex, and the frontal eye field (FEF). The descending cortical pathways of the temporal, parietal, and frontal lobes inner vate the ipsilateral dorsolateral pontine nucleus (DLPN). The neurons in the DLPN decussate and project to the vermis and flocculus in the contralateral cerebellar lobe, which innervates the medial vestibular nucleus (MVN). VN neu rons then decussate and project to the con tralateral CN VI nucleus. The nucleus of CN VI initiates conjugate horizontal eye movements by innervating the ipsilateral lateral rectus mus cle and, via internuclear neurons that travel in the medial longitudinal fasciculus, the contra lateral medial rectus muscle. (Illustration by Rob Flewell, CMI.)
Ствол мозга
Brainstem
Следующий список основных анатомических структур и их функций закладывает основу для обсуждения путей координации сопряженных движений глаз в главе 9 (рис. 1-31):
The following list of major anatomical structures and their functions lays the foundation for the discussion of pathways for coordinating conjugate eye movements in Chapter 9 (Fig 1-31):
riMLF: возбуждающие пачечные нейроны, которые генерируют вертикальные и торсионные саккады
riMLF: excitatory burst neurons that generate vertical and torsional saccades
интерстициальное ядро Кахаля (INC): тормозные пачечные нейроны для вертикальных саккад и нейронный интегратор для вертикального и торсионного взора
interstitial nucleus of Cajal (INC): inhibitory burst neurons for vertical saccades and the neural integrator for vertical and torsional gaze
задняя спайка: проецирующие аксоны от INC к контралатеральным ядрам CN III, IV и VI, а также к INC
posterior commissure: projecting axons from the INC to the contralateral nuclei of CNs III, IV, and VI and the INC
медиальный продольный пучок (MLF): основные пути для ретрансляции сигналов внутри ствола мозга и для связи ядер CN VI с ядрами CN III
medial longitudinal fasciculus (MLF): major pathways for relaying signals within the brainstem and for connecting the nuclei of CN VI to the nuclei of CN III
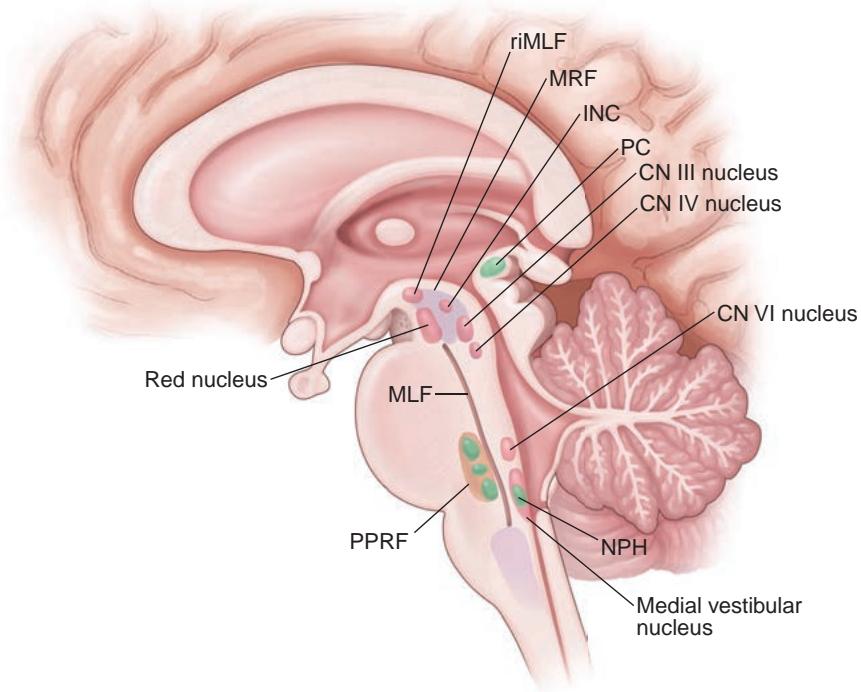
Рисунок 1-31 Схематическое изображение сагиттального среза ствола мозга, показывающее расположение важных структур, участвующих в движениях глаз. Заштрихованная область обозначает парамедианную ретикулярную формацию моста (PPRF). Дорсолатеральное ядро моста (DLPN) не видно, так как эта иллюстрация представляет собой срединный сагиттальный срез, а DLPN расположено латерально; оно лучше всего визуализируется при аксиальном просмотре через ростральную часть моста. CN = черепной нерв; INC = интерстициальное ядро Кахаля; MLF = медиальный продольный пучок; MRF = мезенцефалическая ретикулярная формация; NPH = ядро prepositus hypoglossi; PC = задняя спайка; riMLF = ростральное интерстициальное ядро MLF. (Иллюстрация Роба Флевелла, CMI.)
Figure 1-31 Schematic representation of a sagittal section of the brainstem showing the loca tion of the important structures involved in eye movements. The shaded area indicates the paramedian pontine reticular formation (PPRF). The dorsolateral pontine nucleus (DLPN) is not visible because this illustration is a midsagittal section, and the DLPN is laterally located; it is best visualized on an axial view through the rostral pons. CN = cranial nerve; INC = interstitial nucleus of Cajal; MLF = medial longitudinal fasciculus; MRF = mesencephalic reticular forma tion; NPH = nucleus prepositus hypoglossi; PC = posterior commissure; riMLF = rostral intersti tial nucleus of the MLF. (Illustration by Rob Flewell, CMI.)
дорсолатеральные ядра моста: нейроны для плавного слежения
dorsolateral pontine nuclei: neurons for smooth pursuit
ядро prepositus hypoglossi — медиальное вестибулярное ядро: нейронный интегратор для горизонтального взора
nucleus prepositus hypoglossi-medial vestibular nucleus: neural integrator for hor izontal gaze
PPRF: возбуждающие пачечные нейроны, которые генерируют горизонтальные саккады, и тормозные пачечные нейроны, которые подавляют горизонтальные саккады
PPRF: excitatory burst neurons that generate horizontal saccades and inhibitory burst neurons that suppress horizontal saccades
CN III, IV и VI: нейроны, которые проецируются непосредственно на EOMs
CNs III, IV, and VI: neurons that project directly to EOMs
вестибулярные ядра (CN VIII): нейроны, которые передают вестибулярную информацию генераторам саккад и окуломоторным CN (рис. 1-32, 1-33)
vestibular nuclei (CN VIII): neurons that project vestibular information to saccade generators and ocular motor CNs (Figs 1-32, 1-33)